Планирование артродеза, остеотомии, транспозиции сухожилия или удлинения икроножной мышцы требует понимания того, какую работу выполняет выключаемая структура при ходьбе и куда эта работа переходит после операции. В статье разобраны цикл шага и три переката по Perry, ось, диапазон движения и форма блока таранной кости голеностопного сустава, ось подтаранного сустава и его роль в передаче ротации голени, классическая модель «запирания» поперечного сустава предплюсны и данные кинематических исследований, которые её оспорили. Рассмотрены механизм лебёдки, ферменная модель и пружина свода, вклад связок и собственных мышц стопы, последствия фасциотомии. Отдельно описаны движение первого луча, тыльное разгибание первого плюснефалангового сустава при ходьбе, оси отталкивания по Bojsen-Møller и распределение нагрузки по головкам плюсневых костей, фазная активность и плечи моментов мышц голени, укорочение икроножной мышцы и его компенсации. Каждый раздел завершается выводом для осмотра и планирования операции.
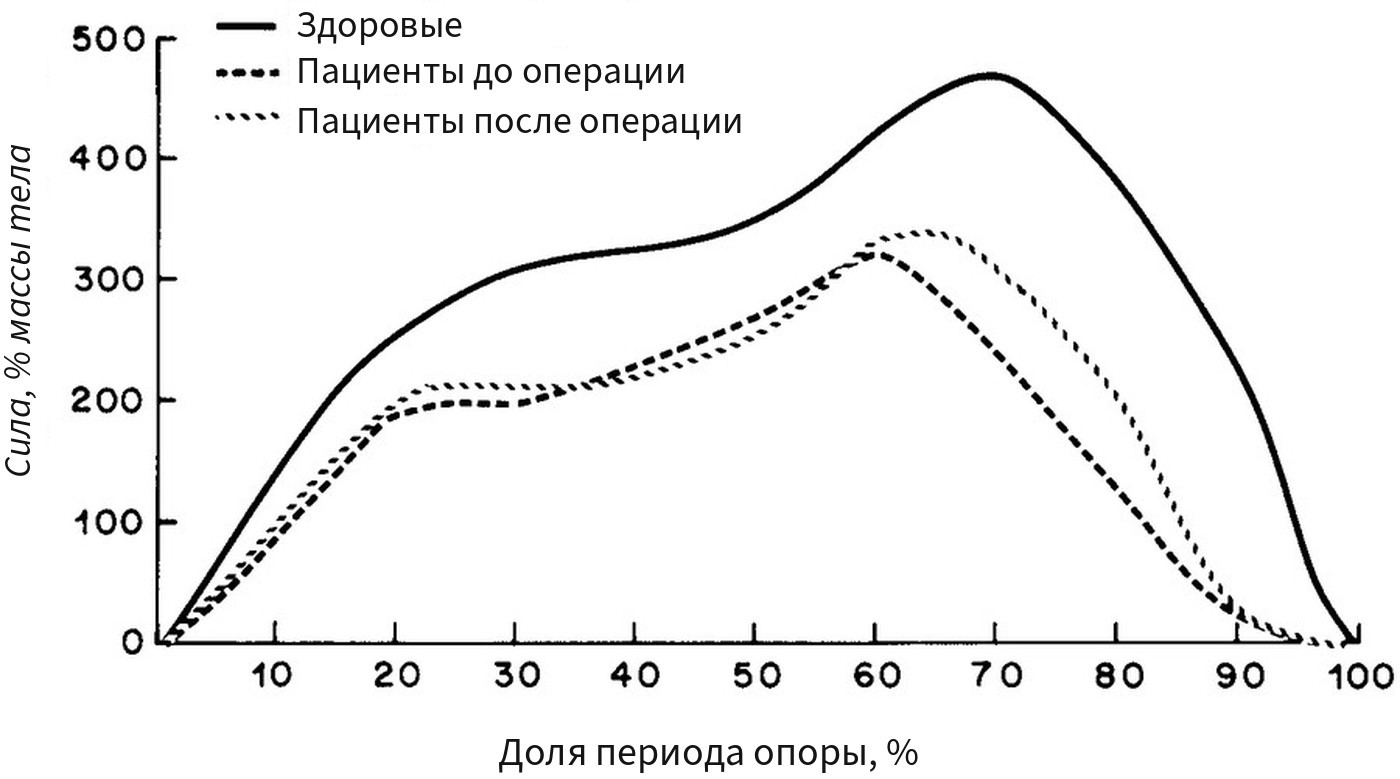
- Сжимающая сила в голеностопном суставе во второй половине опоры достигает примерно 5 масс тела.
- Любая комбинация артродезов, включающая таранно-ладьевидный сустав, ограничивает движение в оставшихся суставах комплекса примерно до 2° и сохраняет лишь 25% экскурсии сухожилия задней большеберцовой мышцы.
- В исследованиях с костными спицами классическая модель «запирания» среднего отдела не подтвердилась: суставы среднего отдела остаются подвижными и при отталкивании.
- Поперечный свод через межплюсневые ткани обеспечивает более 40% продольной жёсткости стопы, рассечение подошвенного апоневроза снижает жёсткость свода на 25%.
- Тыльное разгибание ПФС1 при обычной ходьбе в среднем составляет 42°.
- При пороге тыльного сгибания ≤5° с разогнутым коленом укорочение икроножной мышцы выявлено у 65% пациентов с патологией переднего и среднего отдела против 24% в контроле.
Хирург, выполняющий артродез, остеотомию, транспозицию сухожилия или удлинение мышцы, вмешивается в механику, которая до операции работала в каждом шаге. Выключенное движение не исчезает: его берут на себя соседние суставы, связки и мышцы. Перегрузка этих структур определяет отдалённый результат вмешательства, поэтому решение о том, какой сустав фиксировать и в каком положении, опирается на знание того, что этот сустав делал при ходьбе.
Представления о биомеханике стопы за последние двадцать лет заметно изменились. Классические модели середины XX века (ось подтаранного сустава как «торсионный преобразователь», «запирание» поперечного сустава предплюсны, стопа как «подвижный адаптер» в начале опоры и «жёсткий рычаг» в её конце) были построены на анатомических препаратах и визуальных наблюдениях. Исследования с костными спицами, кадаверные модели ходьбы и рентгеностереофотограмметрия подтвердили часть этих моделей и опровергли другую часть. В статье для каждого раздела указано, что установлено измерением, что остаётся моделью и где идёт спор.
Методика клинического осмотра изложена в статьях «Клинический осмотр стопы» и «Осмотр заднего отдела стопы» , рентгенометрия — в статье «Лучевая диагностика и рентгенометрия стопы и голеностопного сустава» .
| Сустав / структура | Основное движение и диапазон | Роль в шаге | Что теряется при артродезе / повреждении |
|---|---|---|---|
| Голеностопный сустав (ГСС) | Тыльное/подошвенное сгибание: 18,7° за опору (костные спицы) [5], 24,4° (видеоанализ) [1] | Голеностопный перекат, торможение продвижения голени | После артродеза подвижность ПТС +4,1°, медиальной колонны +2,1° [6]; через 22 года — более выраженный артроз суставов стопы на стороне артродеза [7] |
| Подтаранный сустав (ПТС) | Ось 37,4° к горизонтали и 18,0° медиально [8]; инверсия/эверсия 8,3° за опору [5] | Фронтальное движение заднего отдела, связь с ротацией голени | После артродеза ПТС сохраняется 26% движения ТЛС и 56% — ПКС [2] |
| Таранно-ладьевидный сустав (ТЛС) | Наибольший объём движения среди суставов заднего отдела [2] | Ключевой сустав комплекса заднего отдела | Движение в оставшихся суставах — около 2°, экскурсия сухожилия ЗББМ — 25% [2] |
| Пяточно-кубовидный сустав (ПКС) | Подвижен меньше, чем ТЛС [9] | Опора латеральной колонны | После артродеза ПКС сохраняется 67% движения ТЛС, подвижность ПТС почти не меняется [2] |
| Медиальная колонна | Ладьевидно-клиновидный сустав — 50%, ПлКС1 — 41%, ТЛС — 9% сагиттального движения первого луча [10] | Подвижность и опора первого луча | Артродез любого уровня уменьшает подвижность первого луча [10] |
| ПФС1 | Тыльное разгибание при ходьбе 42° [4]; по другой методике около 65° [11] | Перекат через передний отдел, запуск лебёдки | После артродеза короче шаг, меньше момент и мощность ГСС при отталкивании [12] |
| Подошвенный апоневроз | Натяжение до 96% массы тела [13] | Затяжка свода, лебёдка, передача силы ахиллова сухожилия на передний отдел | Жёсткость свода −25% [14]; деформация II плюсневой кости более чем +80% [15] |
| Поперечный свод | Более 40% продольной жёсткости [3] | Жёсткость стопы при отталкивании | Уплощение поперечного свода снижает жёсткость стопы [3] |
| Трёхглавая мышца голени | Сгибатели стопы в 6 раз сильнее разгибателей [16]; плечо ахиллова сухожилия 53,1 мм [17] | Эксцентрическое торможение голени, отталкивание | Ослабление сгибателей стопы после удлинения: −40% через 6 недель, −10% через 24 недели [18] |
| Икроножная мышца | Тыльное сгибание ≤5° при разогнутом колене у 65% пациентов и 24% контроля [19] | Ограничивает продвижение голени при разогнутом колене | Перегрузка переднего отдела: +59% доли силы под передним отделом при натяжении трёхглавой мышцы 93 Н (кадавр) [20] |
Ключевые положения
Стопа при ходьбе работает как система многих подвижных суставов, а ключевым суставом заднего отдела служит таранно-ладьевидный. Голеностопный сустав обеспечивает основной объём сагиттального движения и несёт нагрузку до нескольких масс тела, подтаранный сустав связывает стопу с ротацией голени, но его ось у разных людей ориентирована по-разному. Жёсткость стопы при отталкивании создаётся подошвенным апоневрозом, связками, поперечным сводом и мышцами; классическая модель костного «запирания» среднего отдела кинематическими исследованиями не подтверждена. Каждый артродез переносит выключенное движение на соседние суставы, каждое рассечение или удлинение перераспределяет нагрузку внутри стопы.
Цикл шага
Периоды и фазы
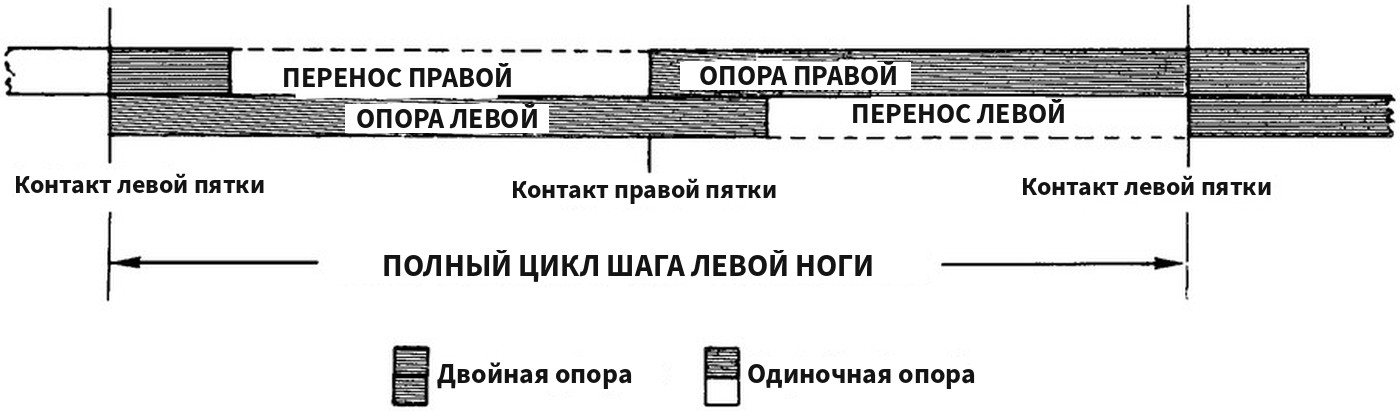
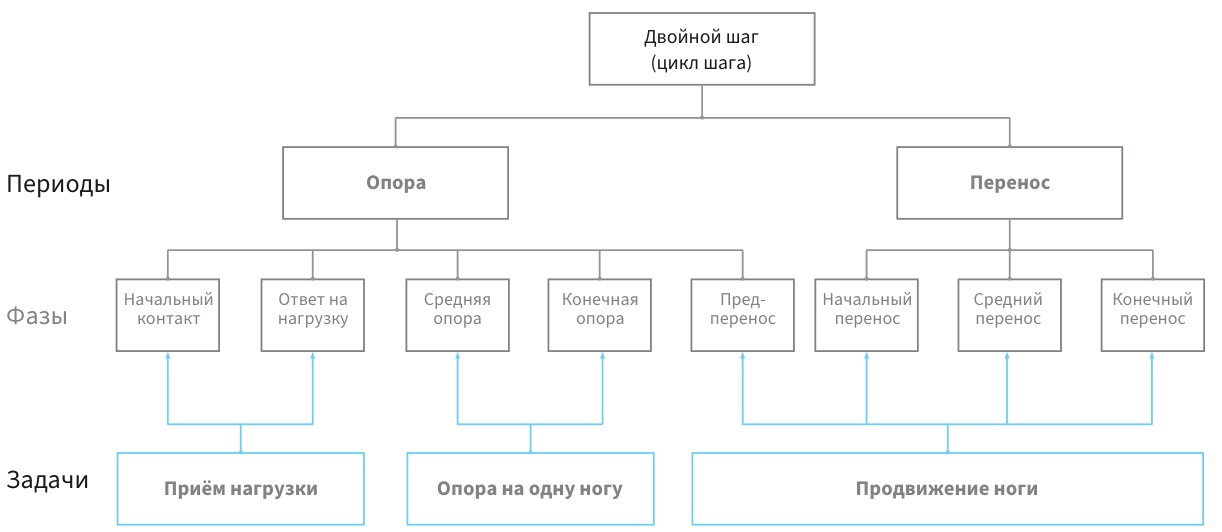
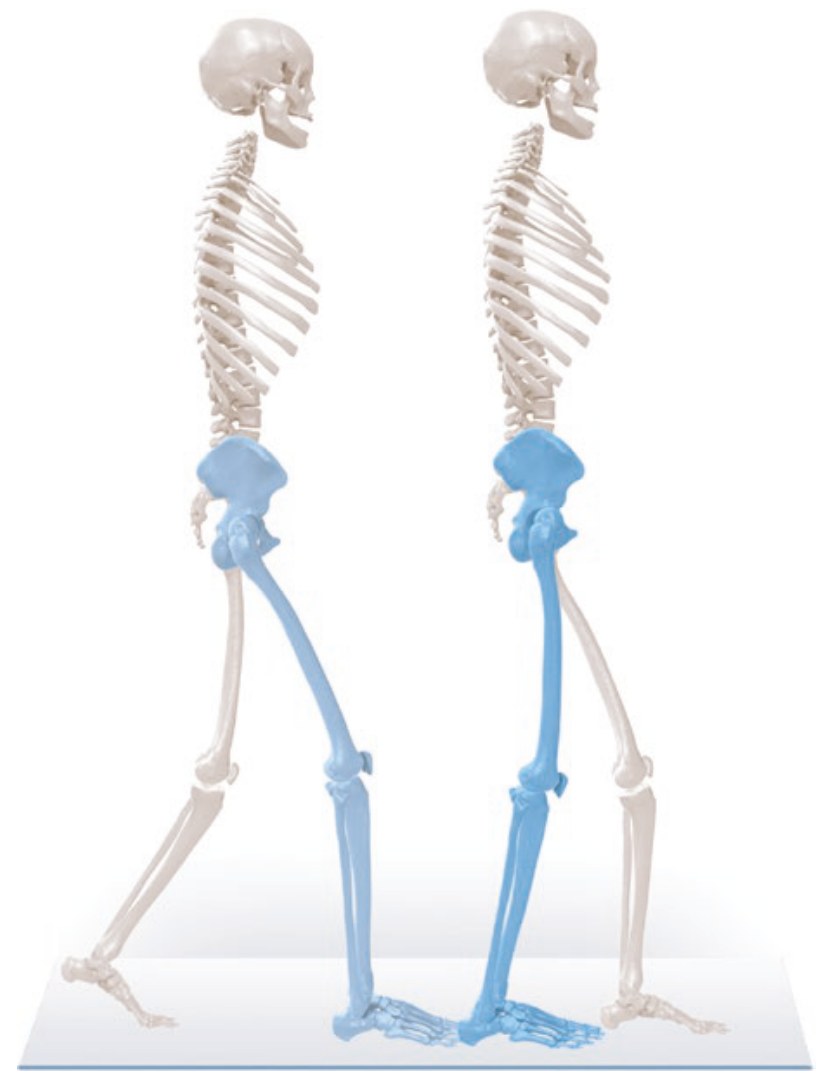
Цикл шага (gait cycle) — интервал от начального контакта одной стопы с опорой до следующего начального контакта той же стопы. Цикл делится на период опоры (stance), когда стопа контактирует с опорой, и период переноса (swing). По Perry опора занимает около 60% цикла, перенос — около 40% [21]. В начале и в конце опоры обе стопы контактируют с опорой одновременно; эти два периода двойной опоры (double support) разделены периодом одиночной опоры, на протяжении которого вся масса тела приходится на одну конечность (рис. 1).
Классическое деление опоры на три фазы (контакт, середина опоры, отталкивание) Perry заменила восемью фазами, выделенными по событиям цикла [21]. Границы фаз в процентах цикла приводятся по Perry [21] в изложении Richie [22]:
- начальный контакт (initial contact), 0–2%: стопа касается опоры, у большинства людей пяткой [21] (рис. 2);
- реакция на нагрузку (loading response), 2–12%: передача массы тела на опорную конечность, первый период двойной опоры; фаза заканчивается отрывом противоположной стопы [21] (рис. 3);
- средняя опора (midstance), 12–31%: одиночная опора, голень продвигается вперёд над неподвижной стопой [21];
- конечная опора (terminal stance), 31–50%: от отрыва пятки до начального контакта противоположной стопы [21] (рис. 4);
- предмах (pre-swing), 50–62%: второй период двойной опоры, разгрузка конечности, отрыв пальцев [21] (рис. 5);
- начальный (62–75%), средний (75–87%) и конечный (87–100%) перенос [21].
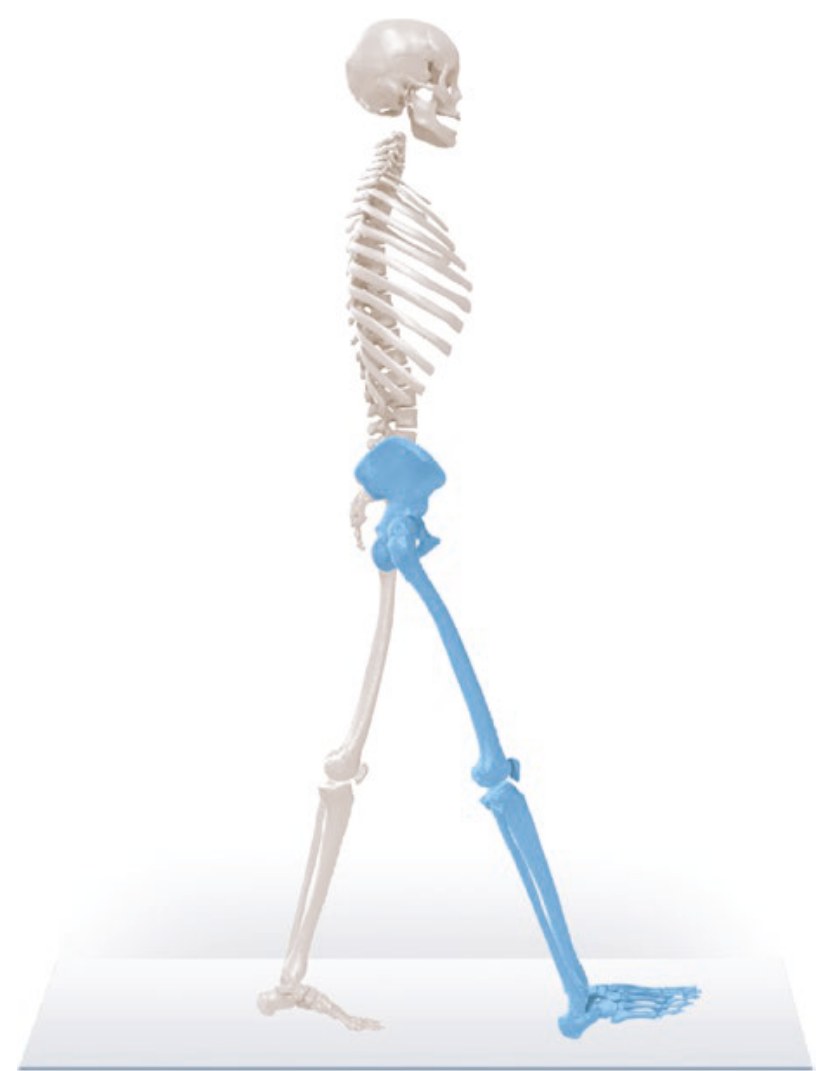
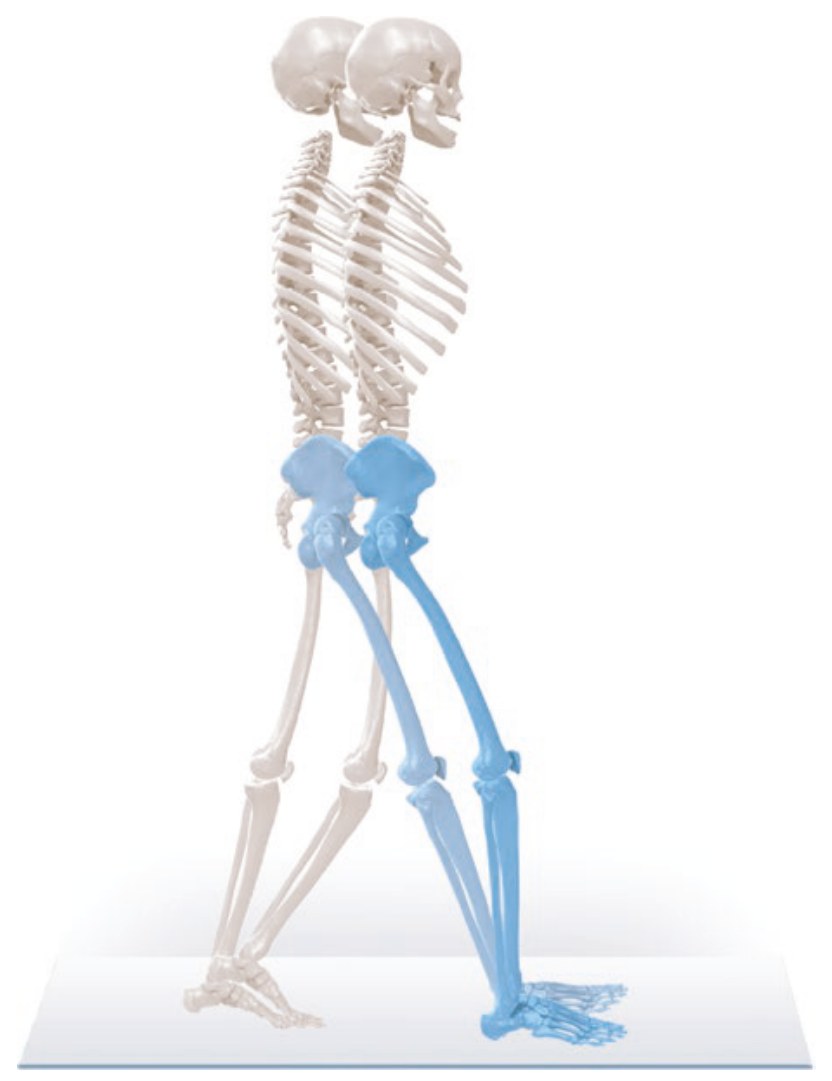
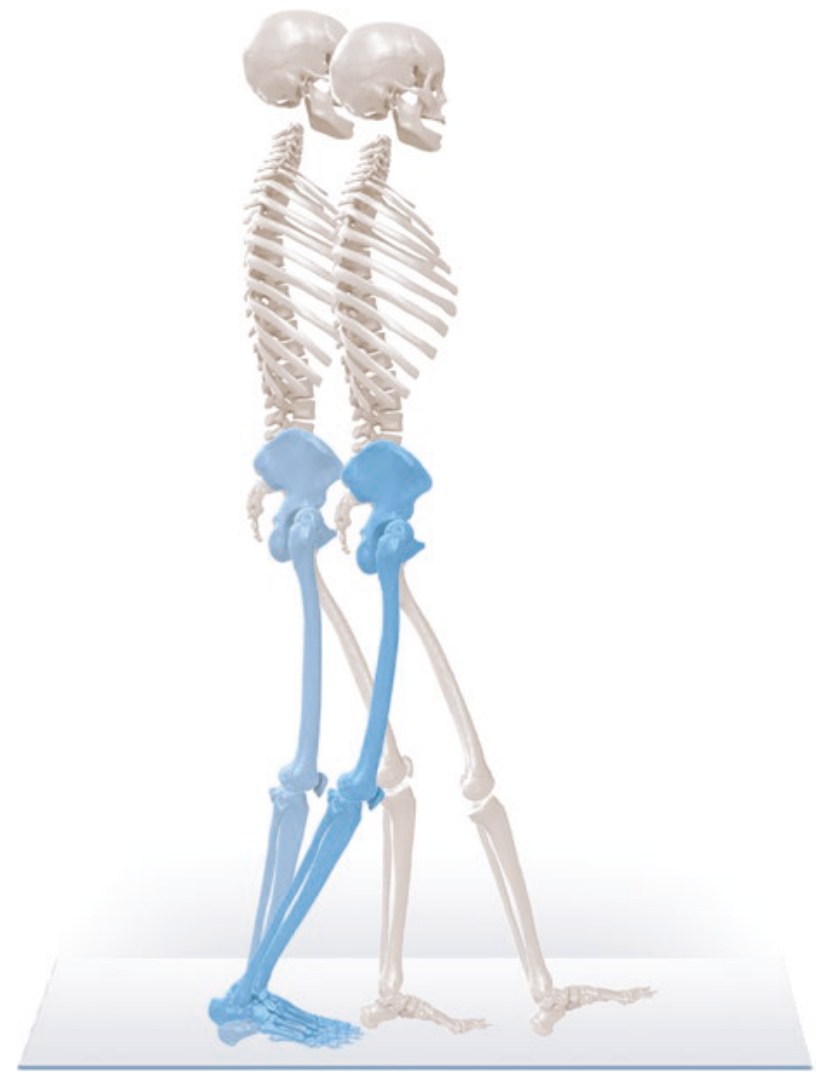
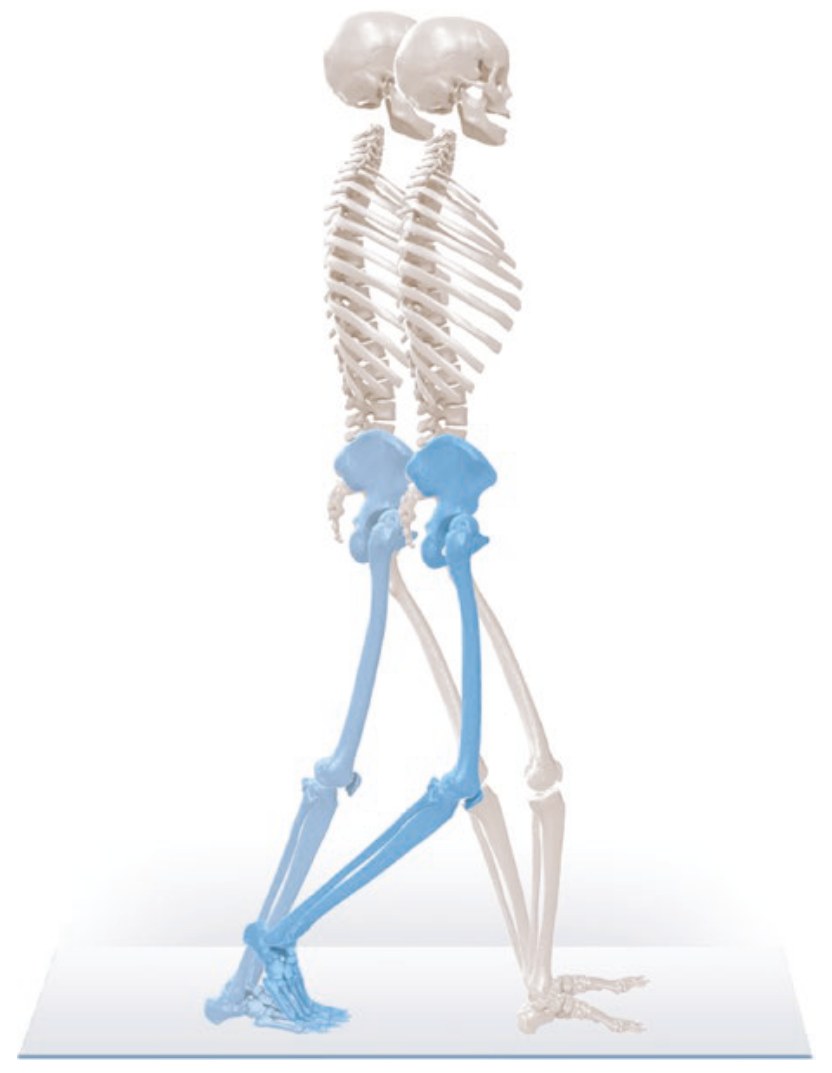
Восемь фаз решают три задачи (рис. 6): принятие нагрузки (начальный контакт и реакция на нагрузку), одиночная опора (средняя и конечная опора) и вынос конечности (предмах и перенос) [21]. Доли фаз зависят от скорости: при медленной ходьбе опора и двойная опора удлиняются.
Три переката
Продвижение тела над опорной стопой Perry описала через три переката (rocker) — три последовательных центра вращения [21] (рис. 7).
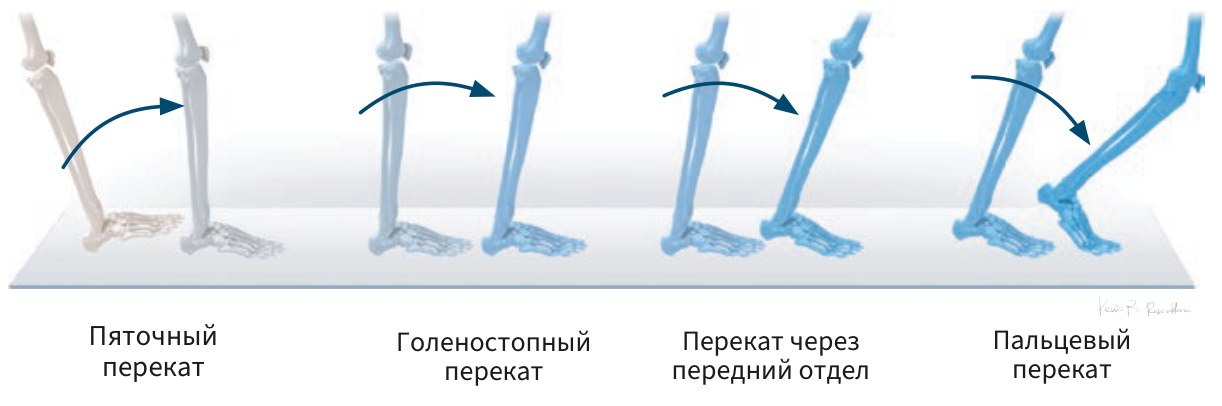
Пяточный перекат (heel rocker) приходится на реакцию на нагрузку. Тело катится через округлый бугор пяточной кости, голеностопный сустав сгибается в подошвенную сторону, и это движение тормозят передняя большеберцовая мышца и длинные разгибатели пальцев, работающие эксцентрически (удлиняясь под нагрузкой). По данным поверхностной электромиографии передняя большеберцовая мышца тормозит подошвенное сгибание заднего отдела от контакта пятки до 10% опоры и эверсию — от 10% опоры до полного контакта стопы с опорой [23]. Начальная фаза поглощает энергию: в голеностопном суставе при принятии нагрузки регистрируется отрицательная работа [24].
Голеностопный перекат (ankle rocker) приходится на среднюю опору. Стопа неподвижна, голень продвигается вперёд, и голеностопный сустав переходит в тыльное сгибание (рис. 8). Продвижение голени тормозит камбаловидная мышца, работающая эксцентрически; заторможенная голень становится опорой, над которой бедро продвигается вперёд и колено разгибается [21].
Перекат через передний отдел (forefoot rocker) приходится на конечную опору. Пятка отрывается от опоры, тело вращается вокруг головок плюсневых костей, плюснефаланговые суставы разгибаются. В начале конечной опоры голеностопный сустав находится в максимальном тыльном сгибании, и трёхглавая мышца удерживает его; переход к подошвенному сгибанию и положительной работе происходит во второй половине конечной опоры и в предмахе. По данным Winter, вслед за поглощением энергии в начале опоры голеностопный сустав даёт доминирующий всплеск положительной работы при отталкивании [24]. Perry трактовала нагрузку на передний отдел в этой фазе как следствие положения тела над стопой и рассматривала сокращение трёхглавой мышцы как фиксацию голеностопного сустава, обеспечивающую перекат через передний отдел [21]. В предмахе нередко выделяют четвёртый, пальцевый перекат (toe rocker) — продвижение через ПФС1.
Понятие переката упрощает картину: оно подразумевает, что стопа вращается как жёсткое тело вокруг одной точки. Исследования с костными спицами показали движение во всех изученных суставах стопы на протяжении опоры, причём движение суставов дистальнее заднего отдела вносит значимый вклад в общую кинематику [9, 25].
Где нагрузки максимальны
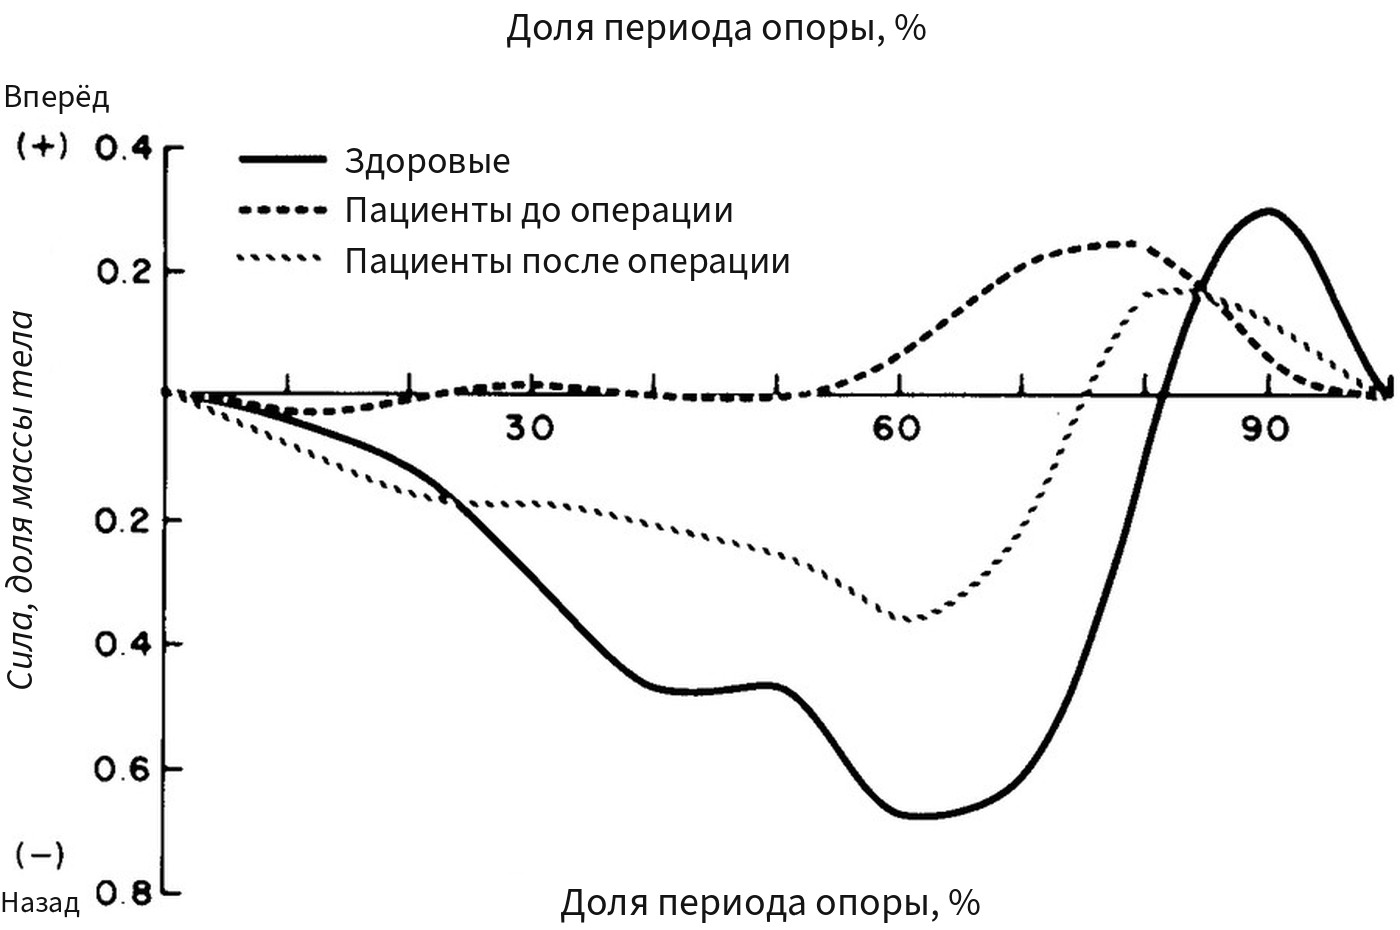
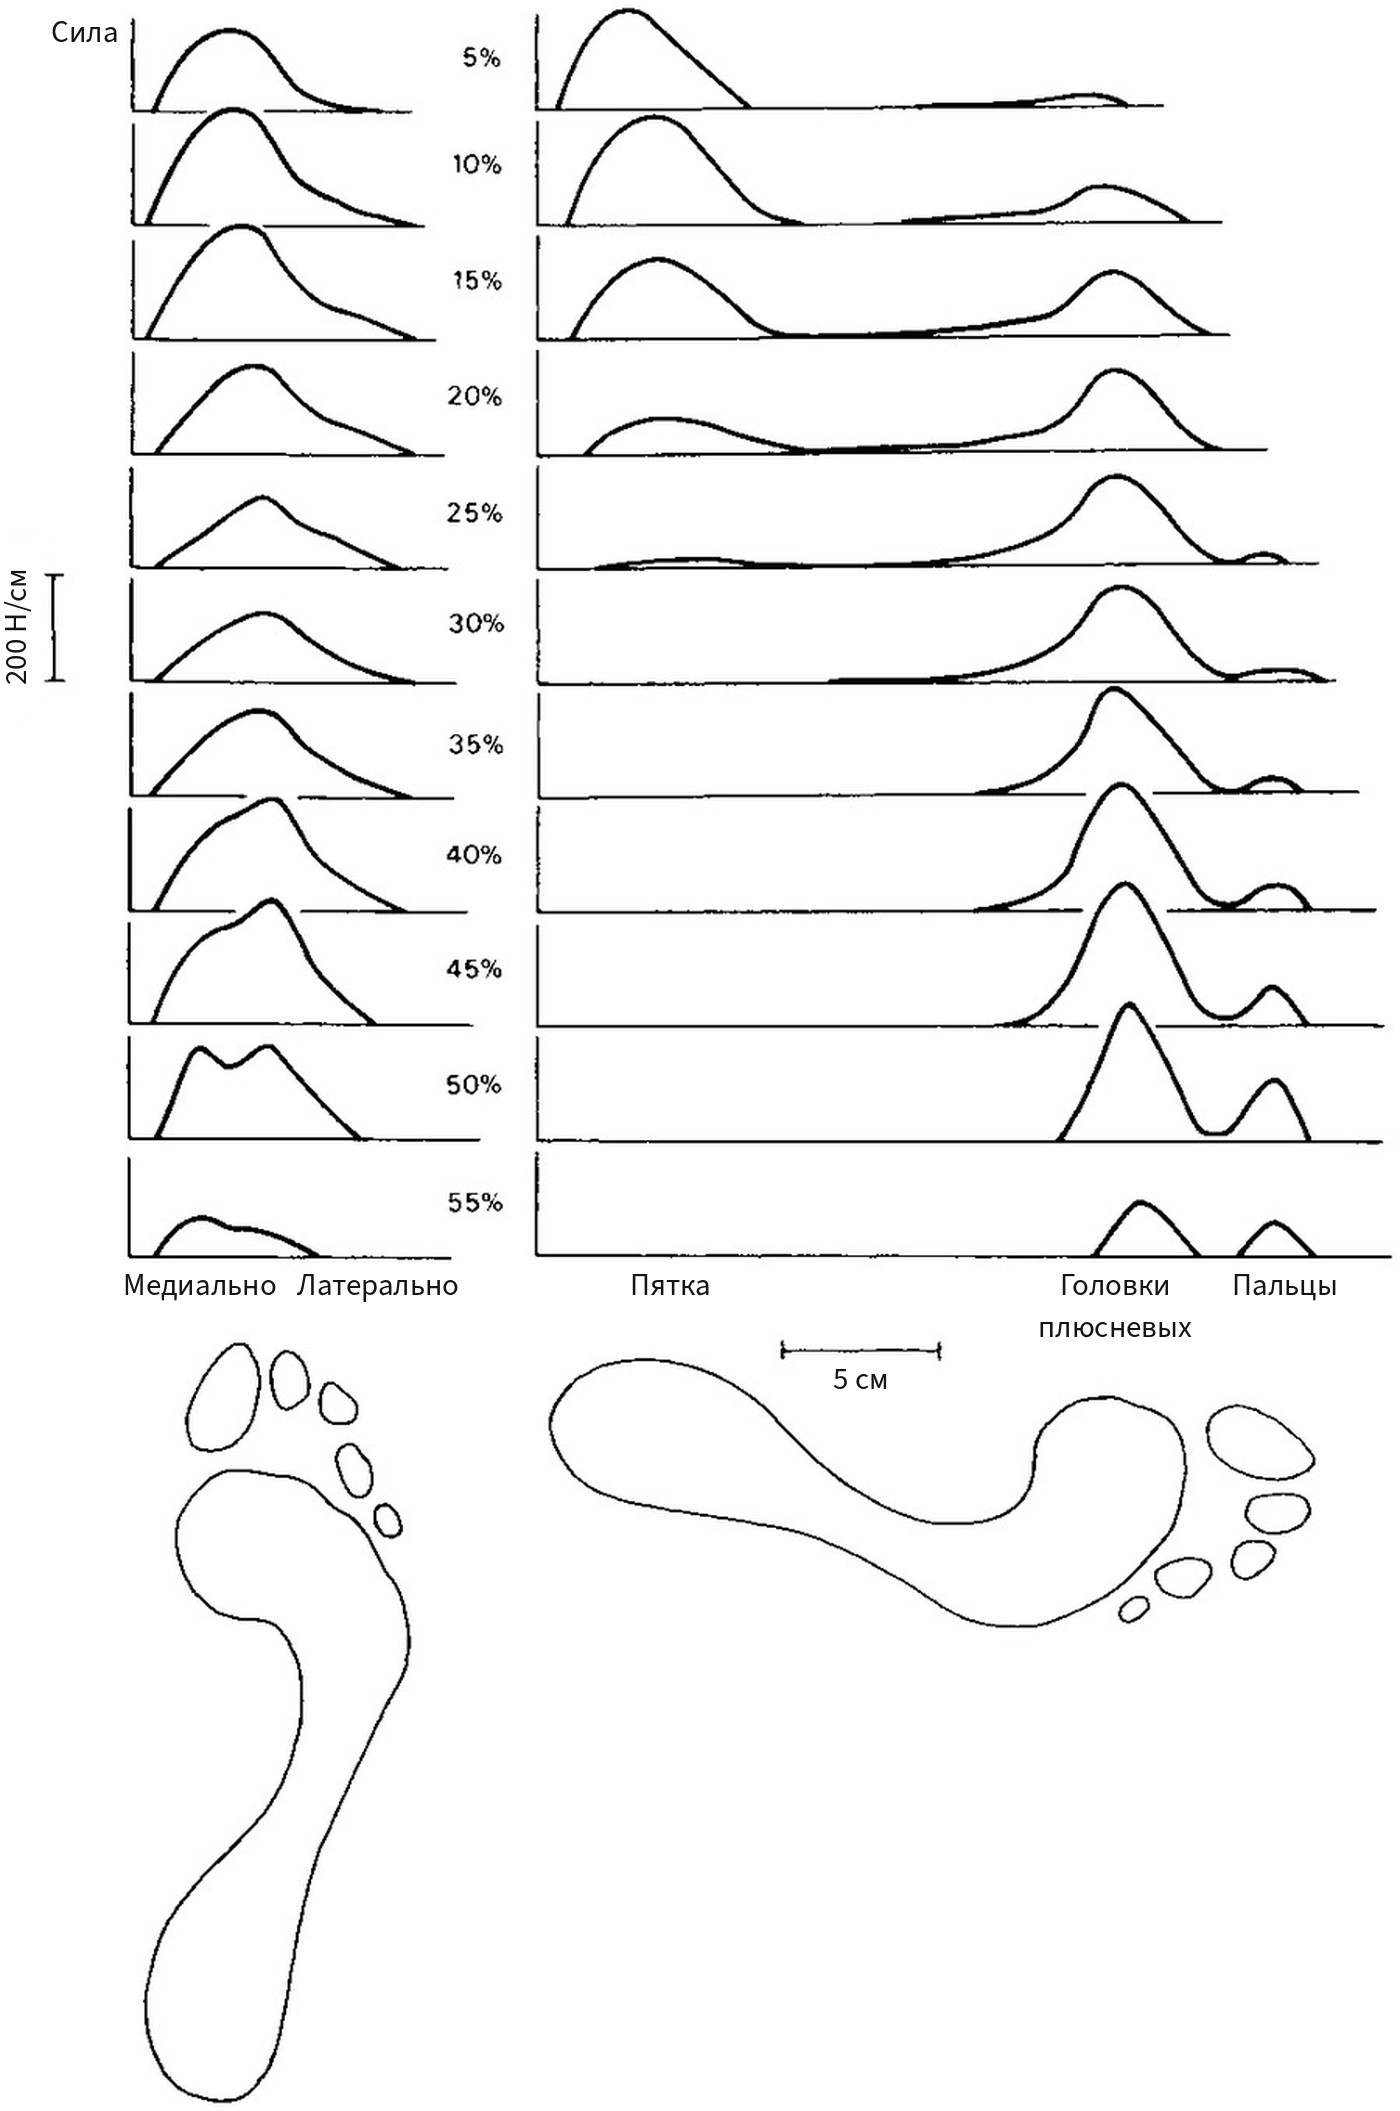
Наибольшие нагрузки на стопу приходятся на вторую половину опоры. В анализе Stauffer и соавт. сжимающая сила в голеностопном суставе возрастала примерно до 5 масс тела в поздней части опоры, а сдвигающая сила, направленная назад, достигала примерно 0,7–1 массы тела и сохранялась на протяжении всей опоры, кроме последних 20% [1] (рис. 9, 10). В кадаверной модели ходьбы Erdemir и соавт. натяжение подошвенного апоневроза (plantar aponeurosis) нарастало на протяжении опоры, достигало пика в её поздней части и в среднем составляло 96 ± 36% массы тела; оно коррелировало с силой ахиллова сухожилия (r = 0,76) [13]. Caravaggi и соавт. в динамической модели получили натяжение апоневроза выше исходного уже в начале опоры и максимальное натяжение в среднем 1,5 массы тела [26]. По расчётной оценке Jacob для второго пика реакции опоры (отталкивание), результирующая сила на головку первой плюсневой кости составляет около 119% массы тела, на головку второй — около 45% массы тела при большом изгибающем моменте [27]. В положении стоя распределение иное: пятка несёт 60% нагрузки, средний отдел — 8%, передний — 28%, а пиковое давление под передним отделом обычно располагается под головками второй или третьей плюсневых костей [28]. При ходьбе нагрузка последовательно переходит с пятки на передний отдел и пальцы (рис. 11).
Значение для осмотра и планирования операции
При осмотре походки оцениваются соотношение фаз опоры и переноса, наличие пяточного контакта, время отрыва пятки относительно противоположной стопы и перекат через первый луч («Клинический осмотр стопы» ). Ранний отрыв пятки, отсутствие пяточного контакта или перекат через латеральный край переднего отдела указывают на выпадение одного из перекатов. Каждый перекат опирается на конкретный сустав: артродез голеностопного сустава выключает голеностопный перекат, артродез ПФС1 меняет пальцевый перекат, и нагрузка этих фаз переходит на соседние суставы. Пик нагрузок на голеностопный сустав, апоневроз и головки плюсневых костей во второй половине опоры объясняет, почему именно в этой фазе проявляются несостоятельность фиксации медиальной колонны, перегрузка головок малых плюсневых костей и боль после фасциотомии.
Голеностопный сустав
Ось вращения
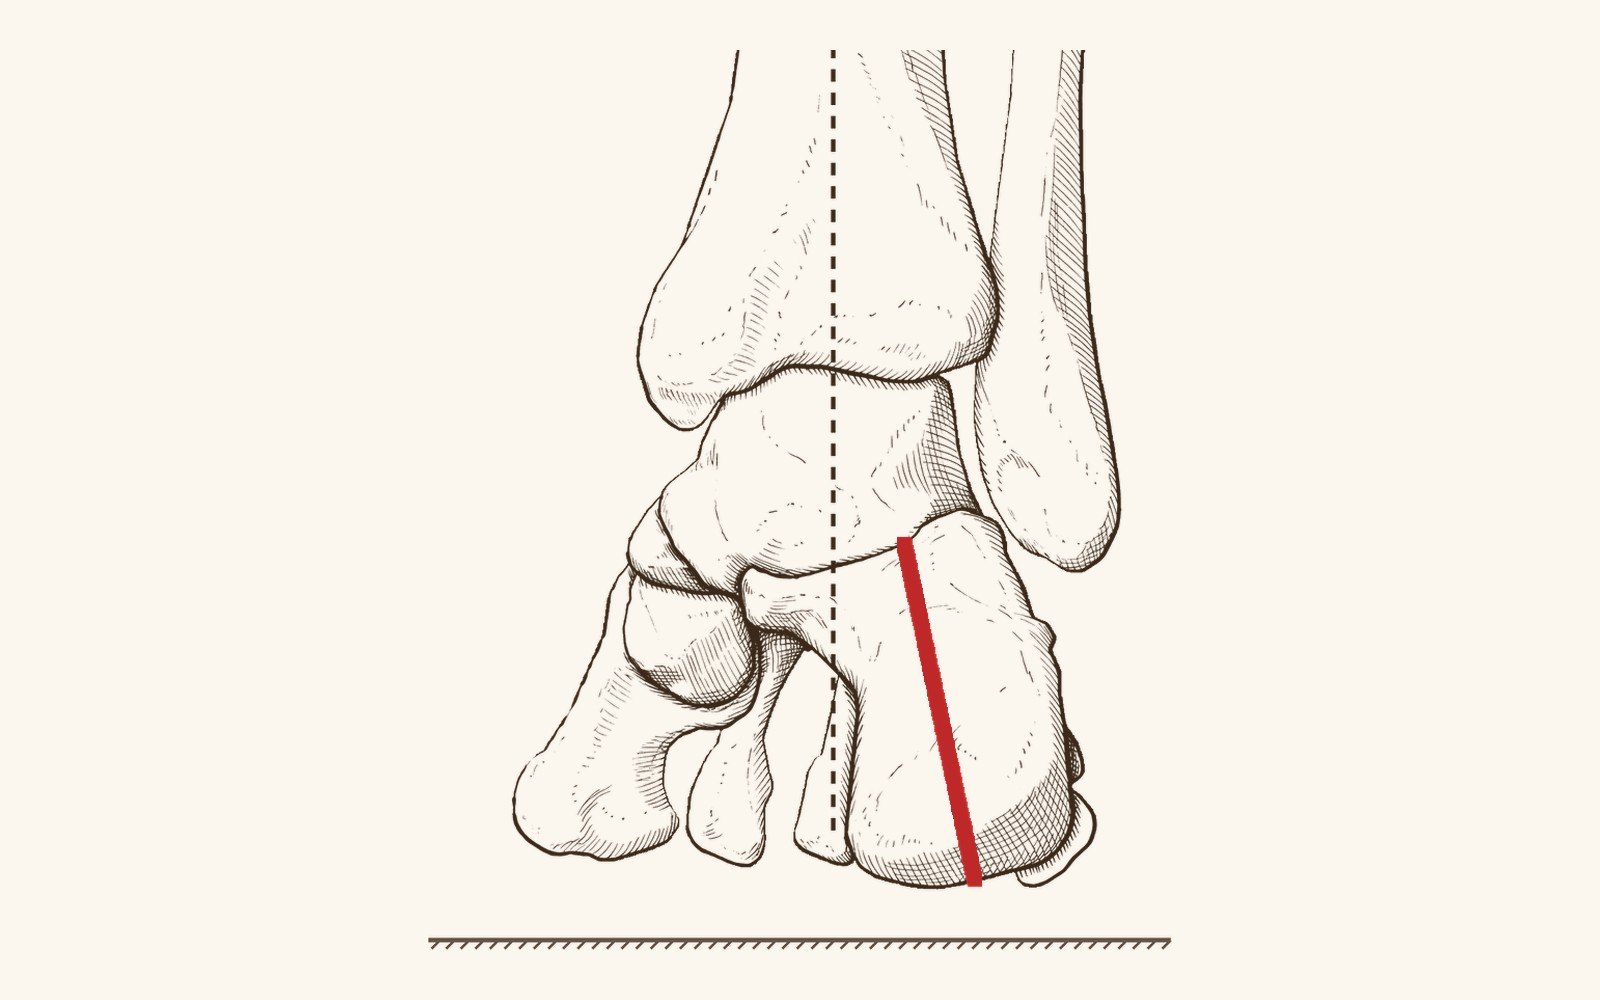
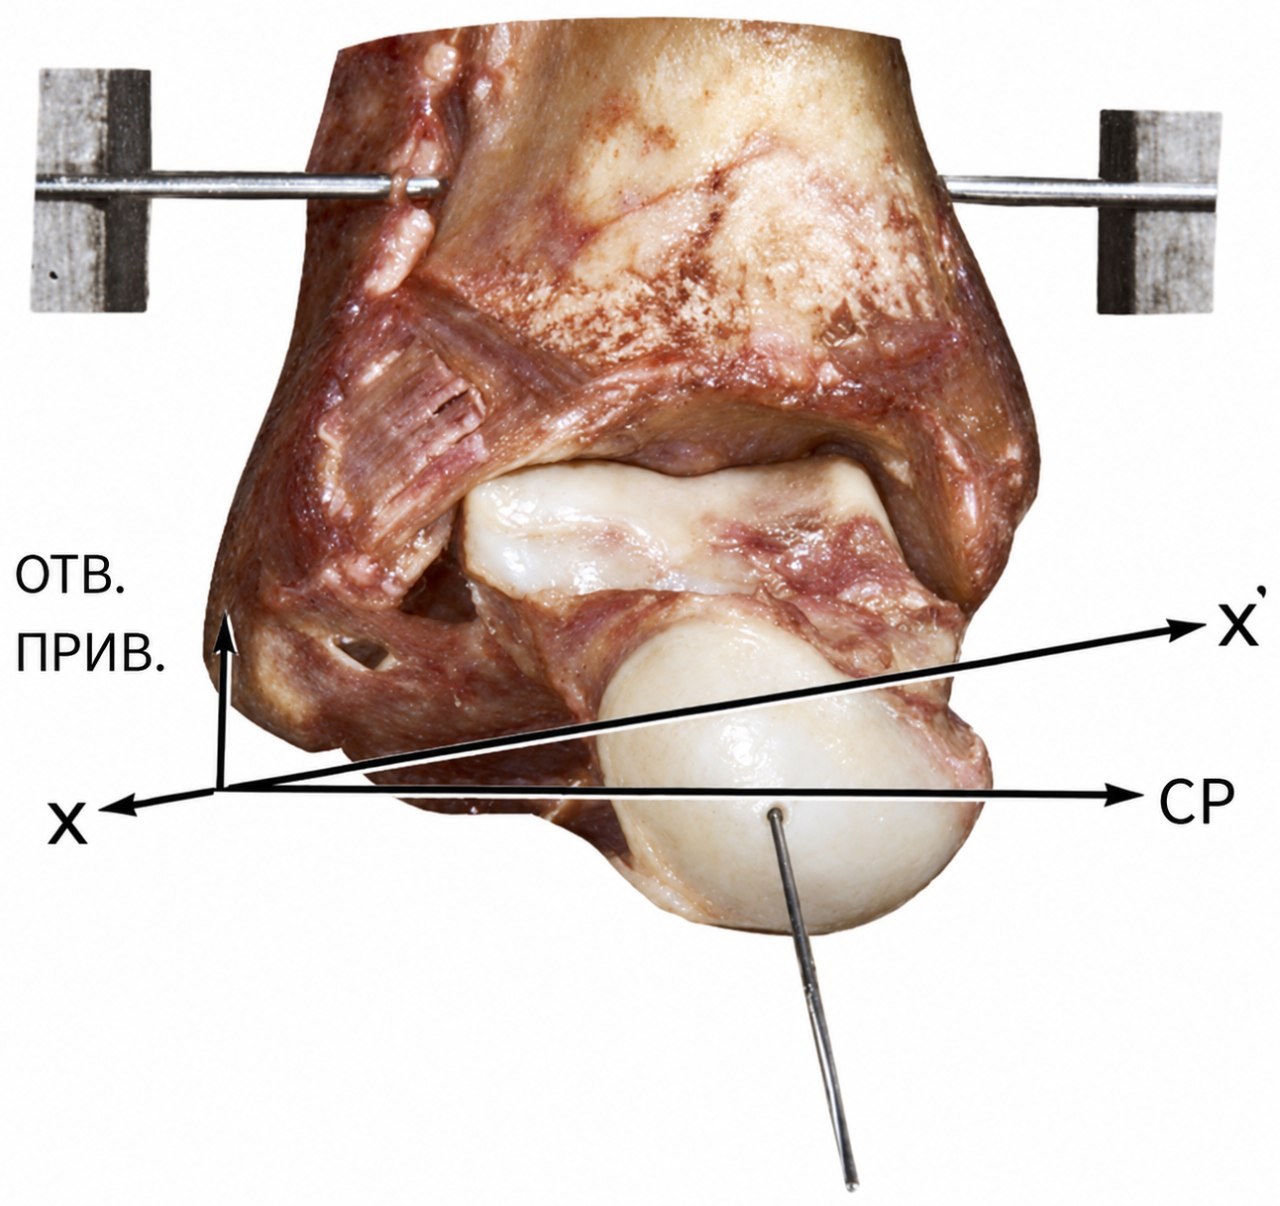
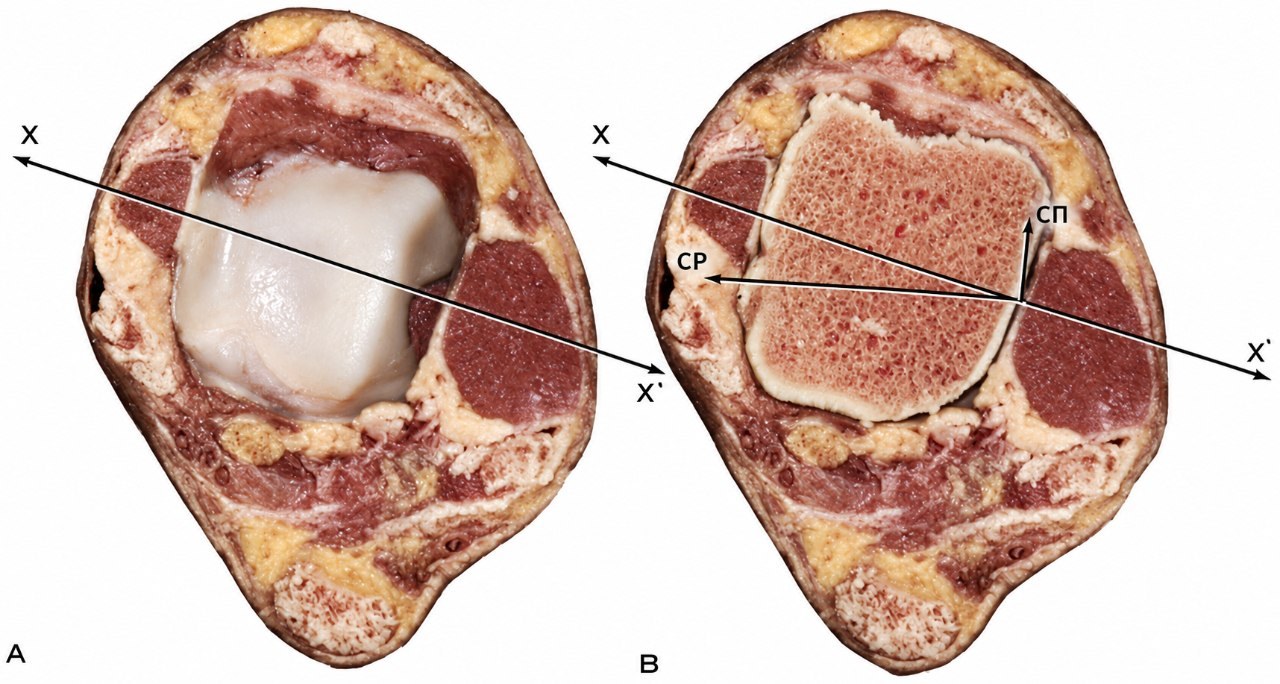
Голеностопный сустав (ГСС, talocrural joint) в классических анатомических работах рассматривается как шарнир с одной осью, проходящей приблизительно через верхушки лодыжек. Латеральная лодыжка расположена ниже и кзади от медиальной, поэтому ось наклонена к горизонтали во фронтальной плоскости и развёрнута кнаружи в горизонтальной (рис. 12, 13); она не перпендикулярна длинной оси большеберцовой кости, и тыльное сгибание сопровождается небольшим отведением и эверсией стопы, подошвенное — приведением и инверсией [29]. Количественная оценка in vivo получена методом оптимизации по кинематике голени и стопы у 14 добровольцев: латеральный конец оси голеностопного сустава был направлен кзади в среднем на 6,8 ± 8,1° и наклонён книзу на 7,0 ± 5,4° [8]. Большие стандартные отклонения показывают, что ориентация оси индивидуальна (рис. 14).
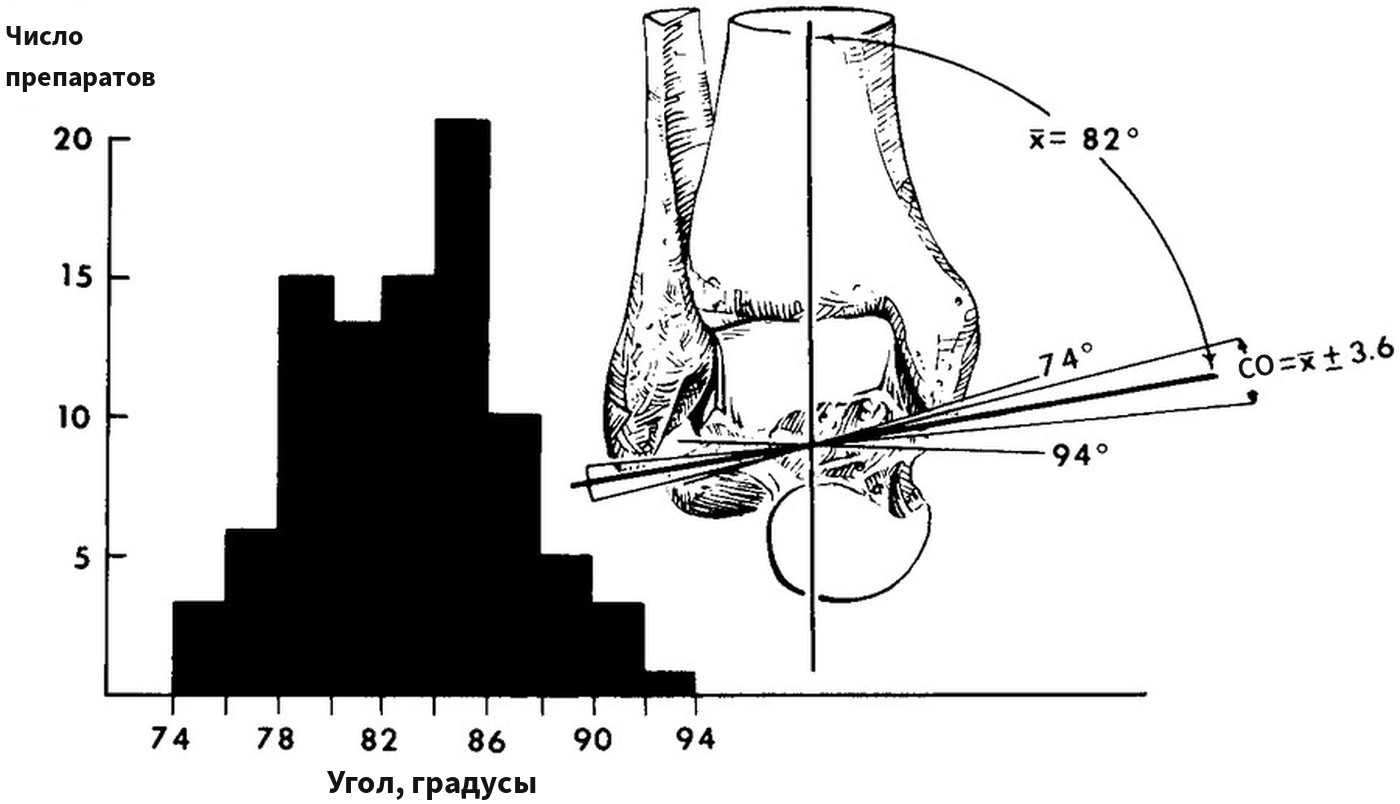
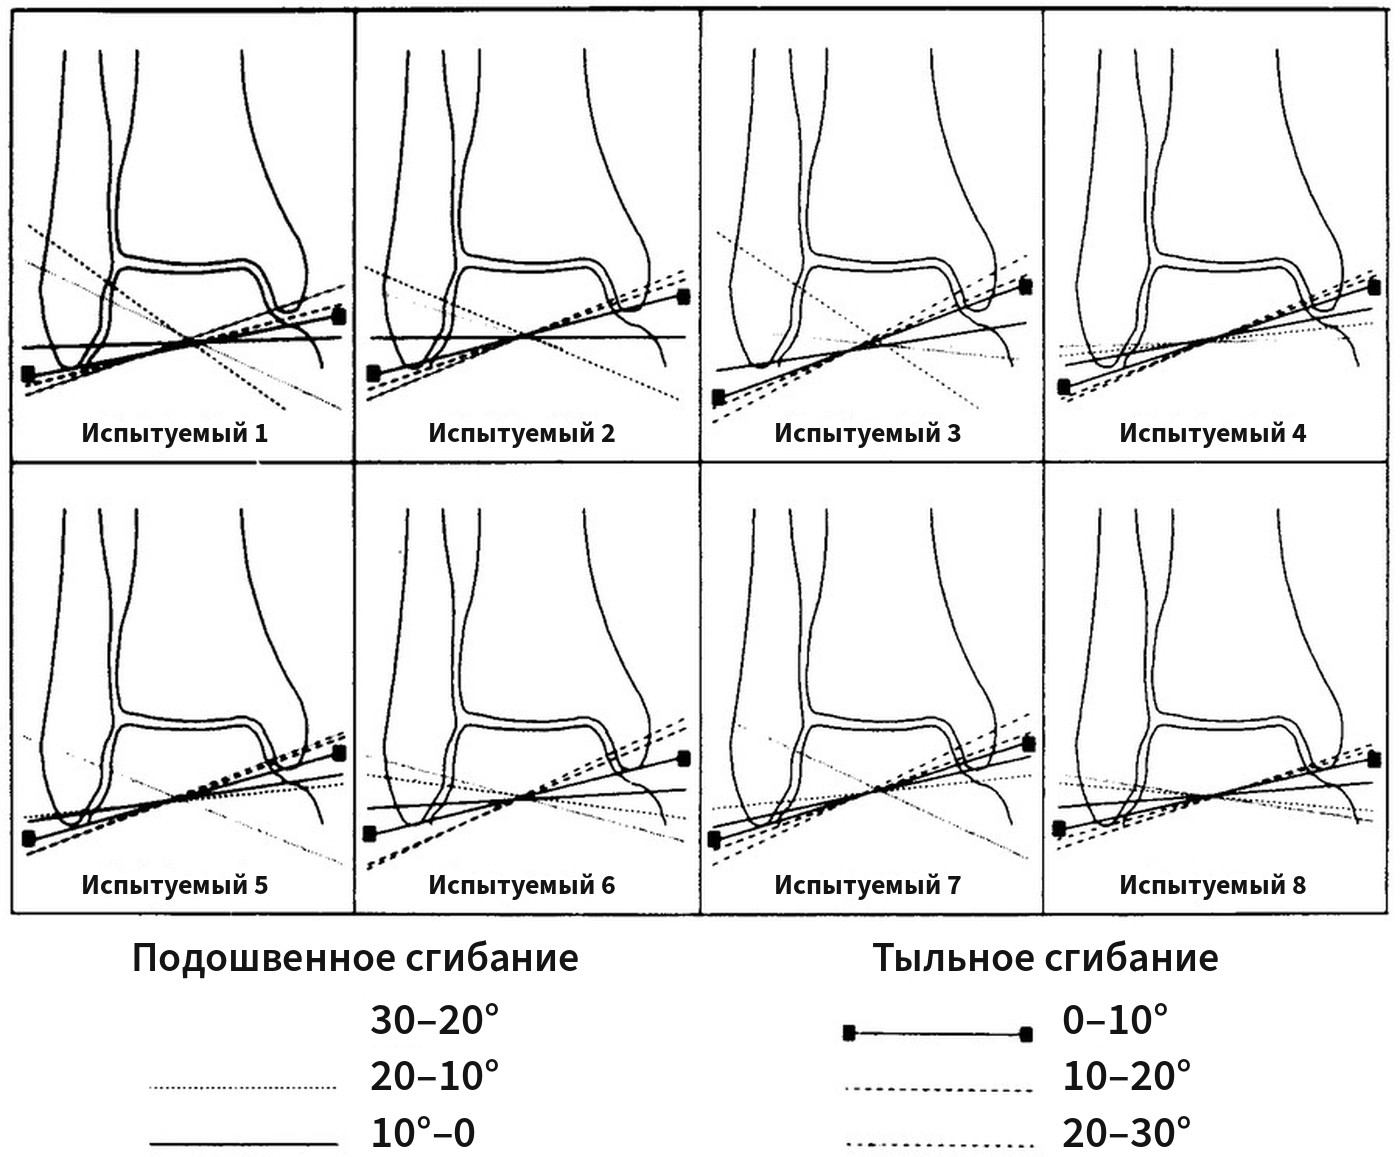
Модель единой неподвижной оси оспаривается (рис. 15). Wolf и соавт. отслеживали таранную и большеберцовую кости костными спицами у пяти добровольцев при ходьбе: ориентация мгновенной оси менялась в течение опоры, и у четырёх из пяти участников наклон оси при тыльном и подошвенном сгибании отличался от предсказанного по морфологии таранной кости в противоположную сторону [30]. Авторы заключили, что ось голеностопного сустава при динамической нагрузке нельзя вывести ни из формы костей, ни из квазистатических испытаний.
Форма блока таранной кости
Inman описывал блок таранной кости (trochlea tali) как усечённый конус с вершиной, обращённой медиально, и с большим радиусом латерального края; блок шире спереди, поэтому при тыльном сгибании в вилку входит его широкая часть [29]. Siegler и соавт. по трёхмерным моделям таранной кости у 26 здоровых взрослых показали, что медиальный и латеральный края блока не параллельны, радиус кривизны медиального края больше латерального, а поверхность блока лучше описывается скошенной усечённой конической седловидной формой с вершиной, обращённой латерально [31]. Авторы указали, что такая форма совместима с пронацией и супинацией в голеностопном суставе и обеспечивает конгруэнтность при инверсии и эверсии.
Диапазон движения и потребность при ходьбе
Объём движения в голеностопном суставе при ходьбе меньше пассивного диапазона. Arndt и соавт. с внутрикостными спицами в большеберцовой, таранной и пяточной костях у трёх добровольцев получили за опору 18,7° тыльного/подошвенного сгибания в голеностопном суставе против 3,7° в подтаранном, 6,3° инверсии/эверсии против 8,3° и 5,0° отведения/приведения против 6,1° [5]. По двумерному видеоанализу Stauffer и соавт. здоровые испытуемые использовали за опору в среднем 24,4° сагиттального движения в голеностопном суставе [1]. При максимальном пассивном движении от тыльного сгибания к подошвенному дуга голеностопного сустава составила 47,5 ± 2,2°, подтаранного — 3,1 ± 6,8° (флюороскопия с МРТ-моделью) [32].
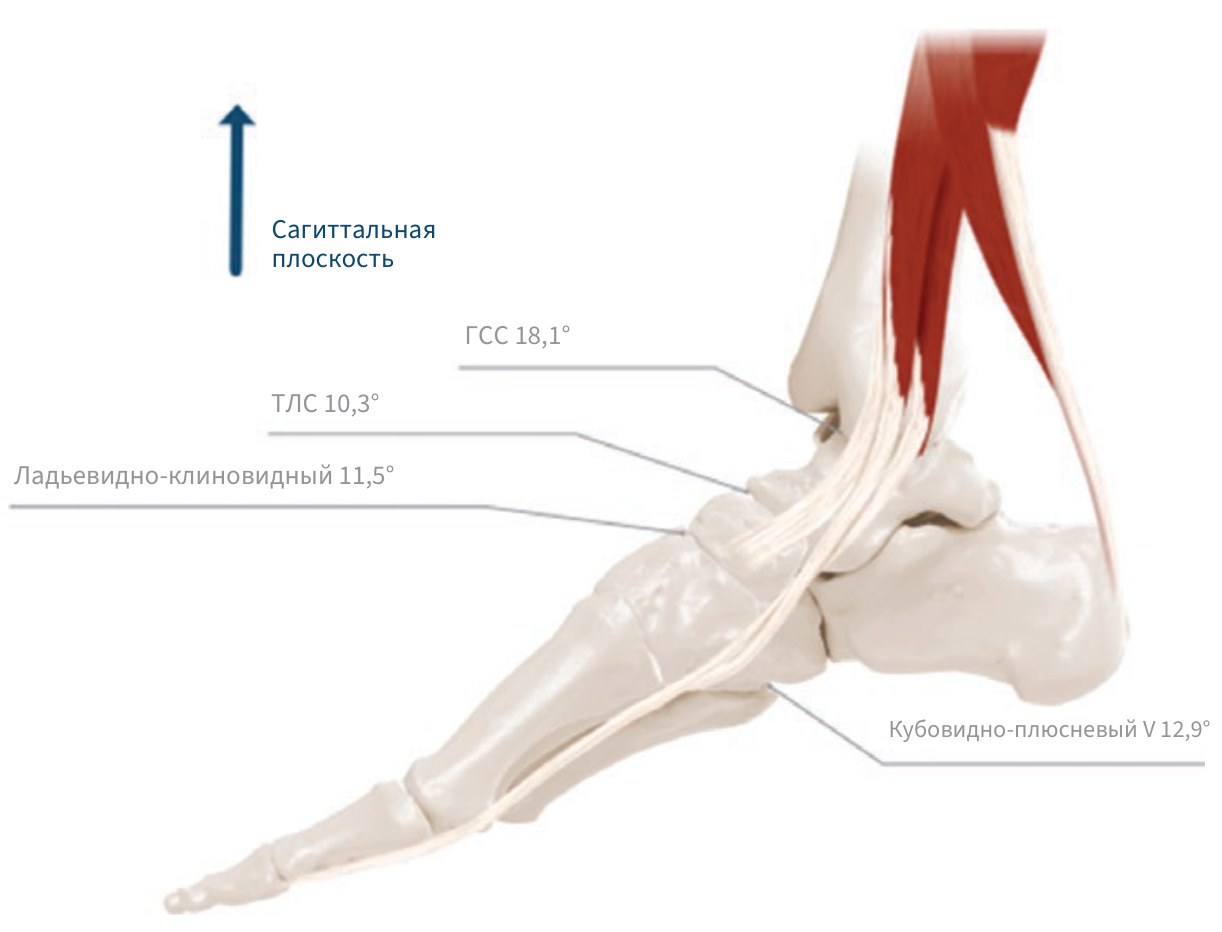
Голеностопный сустав выполняет основную часть сагиттального движения, но не всё (рис. 16). Lundberg и соавт. методом рентгеностереофотограмметрии под нагрузкой показали, что при переходе стопы из 30° подошвенного сгибания в нейтральное положение на суставы свода приходится от 10% до 41% общего поворота вокруг поперечной оси [33]. Поэтому угол тыльного сгибания, измеренный гониометром по стопе, включает движение среднего отдела. В контрольной группе DiGiovanni и соавт. среднее максимальное тыльное сгибание при разогнутом колене составило 13,1° [19]; клинический порог нормы, принятый в определениях эквинуса, — тыльное сгибание не менее 10° при разогнутом колене [34] (раздел «Укорочение икроножной мышцы»).
Что происходит с соседними суставами после артродеза ГСС
После артродеза голеностопного сустава сагиттальное движение переходит в подтаранный сустав и медиальную колонну. В проспективном рентгенологическом исследовании Sealey и соавт. (48 пациентов) суммарное сагиттальное движение (голеностопный, подтаранный суставы и медиальная колонна) до операции составляло 37,2°, из них 17,8° приходилось на голеностопный сустав; после артродеза суммарное движение снизилось до 22,6° [6]. Подвижность подтаранного сустава увеличилась на 4,1° (с 5,2° до 9,3°), медиальной колонны — на 2,1° (с 14,3° до 16,4°); компенсаторный прирост составил 10,8% [6]. Увеличенное движение в подтаранном суставе сопровождалось импинджментом задней части задней фасетки, что авторы связали с последующим артрозом; больший компенсаторный прирост ассоциировался с лучшим качеством жизни, а высота свода до операции предсказывала остаточное движение [6].
Изменение походки после артродеза описано Beyaert и соавт.: при ходьбе босиком у девяти пациентов с артродезом в нейтральном положении проекция реакции опоры смещалась вперёд в средней опоре, пятка отрывалась раньше, голень наклонялась вперёд меньше; в обуви эти отличия от контроля сглаживались, а с ростом скорости ходьбы нарастали [35]. Авторы связали эти изменения с патологическими напряжениями в среднем отделе.
Отдалённые последствия показало исследование Coester и соавт.: у 23 пациентов через 22 года (12–44 года) после изолированного артродеза голеностопного сустава по поводу посттравматического артроза артроз подтаранного, таранно-ладьевидного, пяточно-кубовидного, ладьевидно-клиновидного, предплюсне-плюсневых суставов и ПФС1 на стороне операции был выраженнее, чем на противоположной стороне, тогда как в коленном суставе и малых плюснефаланговых суставах различий не было [7].
Значение для осмотра и планирования операции
При осмотре тыльное сгибание оценивается с фиксацией среднего отдела, иначе движение в суставах свода маскирует ограничение в голеностопном суставе («Осмотр заднего отдела стопы» ). Индивидуальная ориентация оси и коническая форма блока объясняют, почему тотальный эндопротез с фиксированной осью и артродез меняют не только сагиттальное движение. При планировании артродеза голеностопного сустава учитывается состояние подтаранного сустава и медиальной колонны: эти суставы примут на себя выключенное движение, и исходный артроз в них ухудшает прогноз. Отдалённые данные о прогрессировании артроза суставов стопы после артродеза голеностопного сустава входят в обсуждение с пациентом выбора между артродезом и эндопротезированием.
Подтаранный сустав и связь с голенью
Ось Хенке и Мантера
Подтаранный сустав (ПТС, subtalar joint) образован задней, средней и передней фасетками таранной и пяточной костей. Ось его движения, описанная Хенке (Henke) в 1859 году, проходит косо: от заднелатеральной подошвенной части пяточной кости к переднемедиальной тыльной части шейки таранной кости. Manter на анатомических препаратах описал движение в подтаранном суставе как винтовое вокруг этой оси, наклонённой и в сагиттальной, и в горизонтальной плоскости [36] (рис. 17). Inman на серии препаратов показал, что наклон оси у разных людей различается в широких пределах [29] (рис. 18).
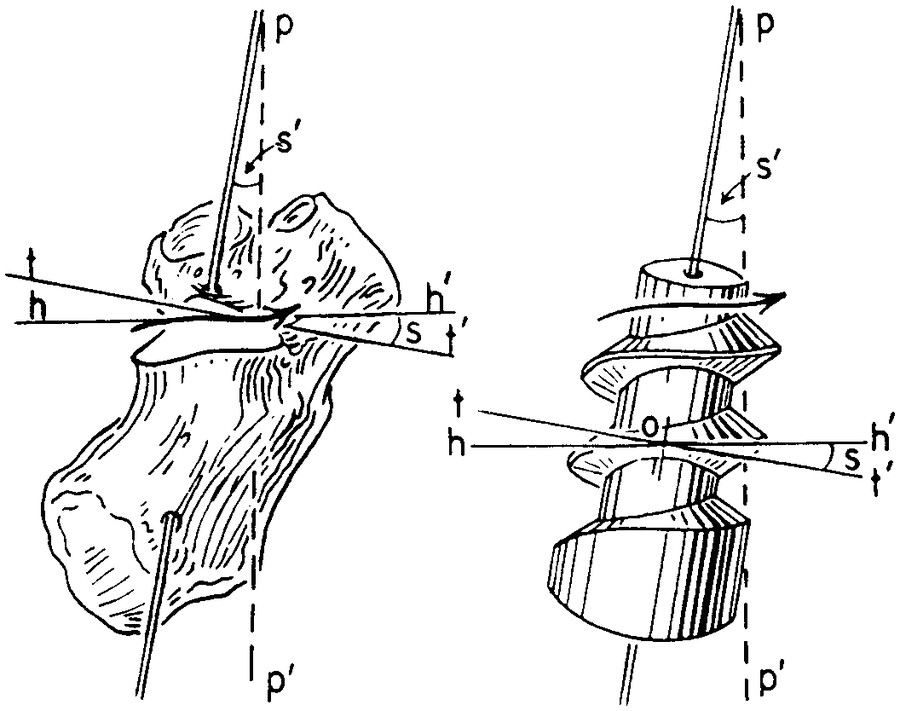
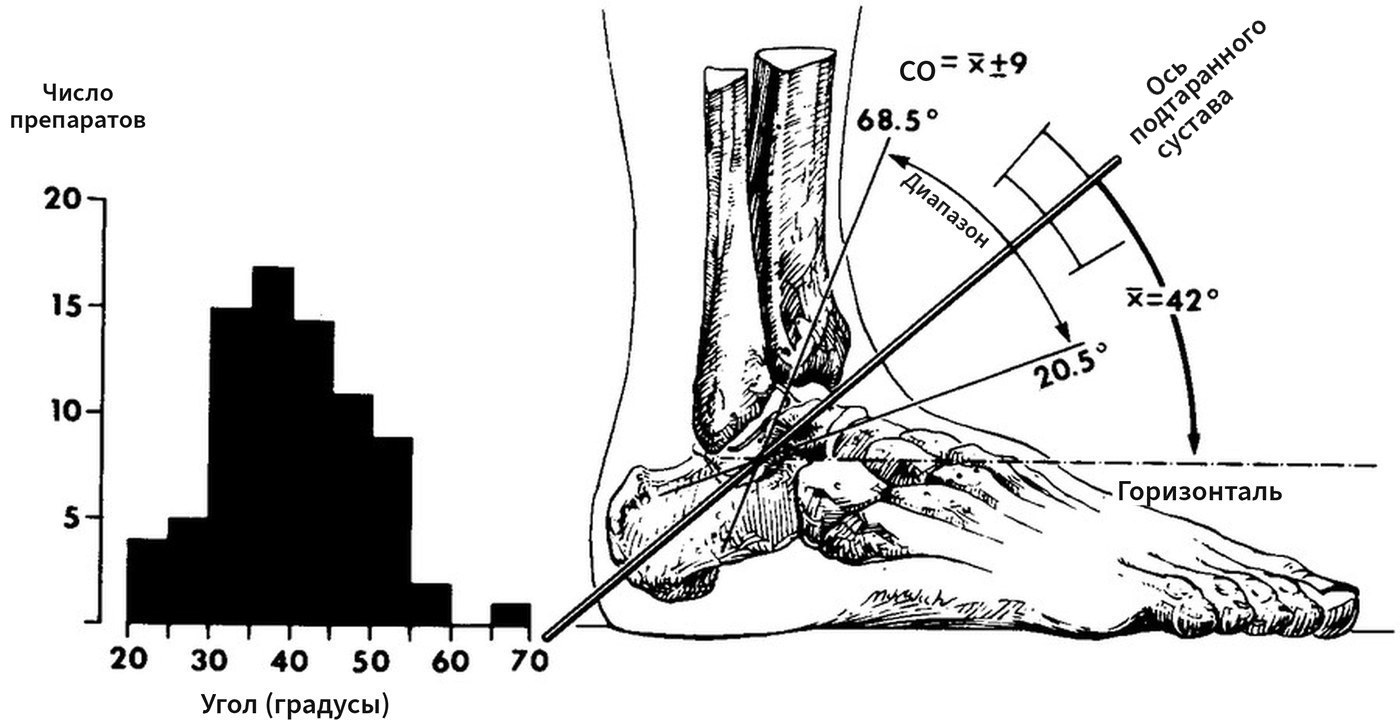
По данным van den Bogert и соавт., полученным in vivo у 14 добровольцев, ось подтаранного сустава наклонена к горизонтальной плоскости в среднем на 37,4 ± 2,7° и отклонена медиально от продольной оси стопы на 18,0 ± 16,2° [8]. Разброс медиального отклонения сопоставим с самой величиной. В исследовании с внутрикостными спицами ориентация винтовых осей и голеностопного, и подтаранного суставов также различалась между испытуемыми [5].
Пронация и супинация в трёх плоскостях
Поскольку ось косая, движение вокруг неё раскладывается на компоненты во всех трёх плоскостях (рис. 19, 20). Без нагрузки пяточная кость движется под таранной: эверсия сочетается с тыльным сгибанием и отведением, инверсия — с подошвенным сгибанием и приведением. Под нагрузкой пяточная кость фиксирована реакцией опоры, и движется таранная кость вместе с голенью: при пронации пяточная кость эвертируется, таранная кость сгибается в подошвенную сторону и приводится, голень ротируется внутрь [29]. Термины «пронация» и «супинация» в этом смысле описывают трёхплоскостное движение, а эверсия и инверсия — его фронтальный компонент (рис. 21).
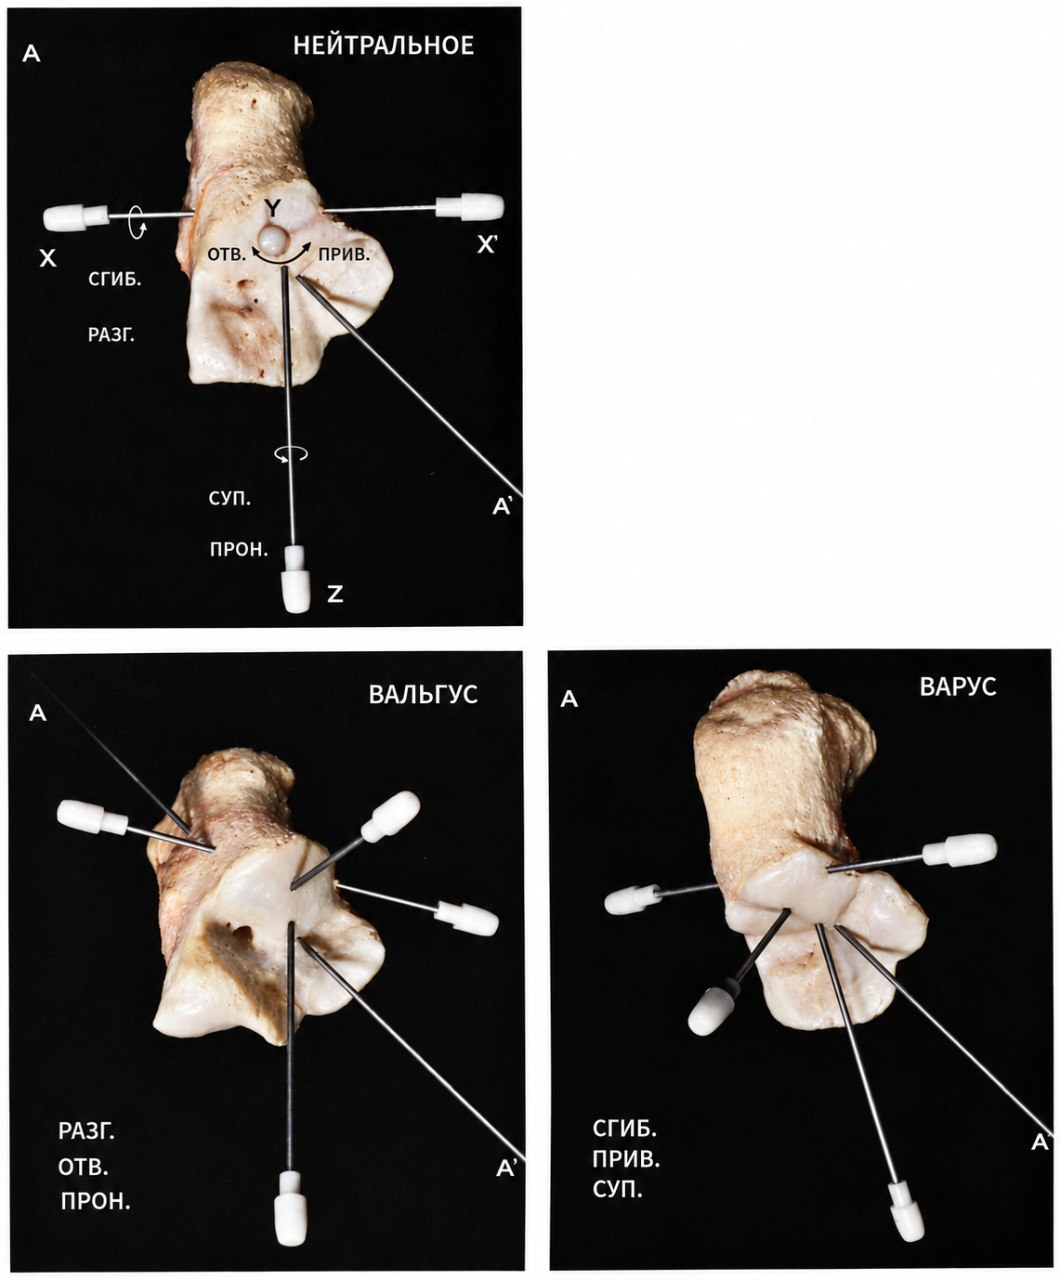
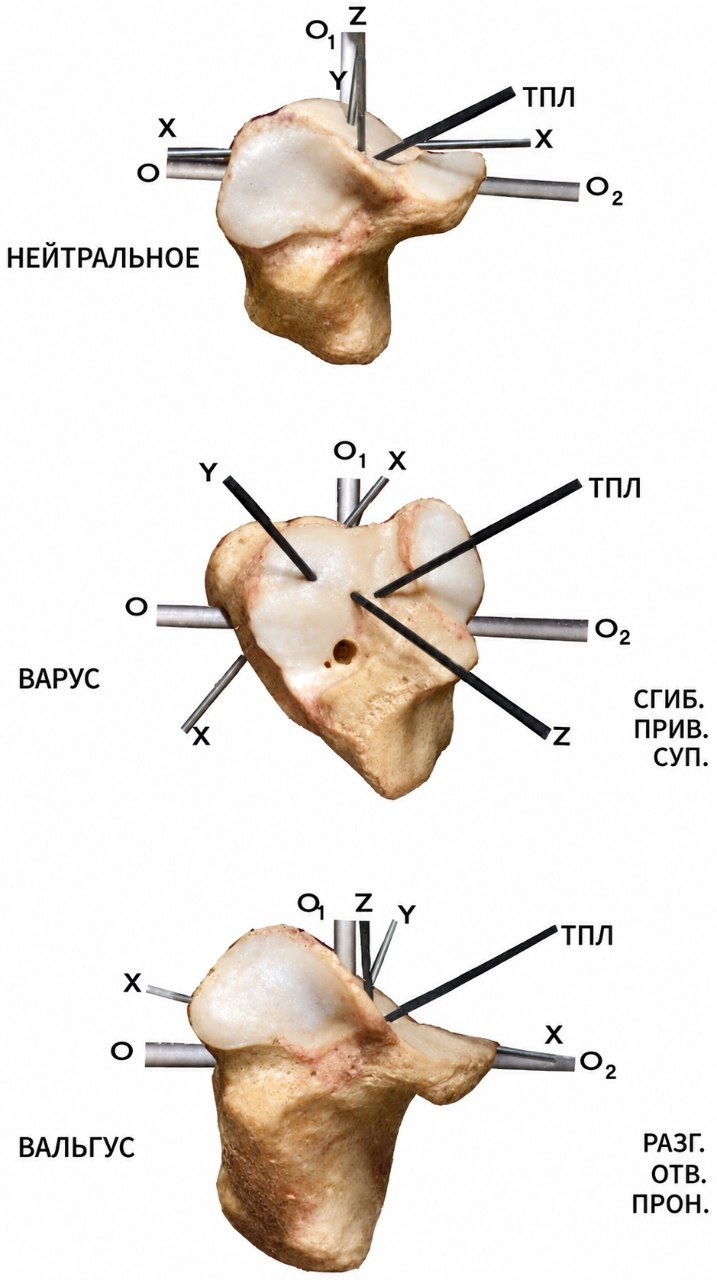
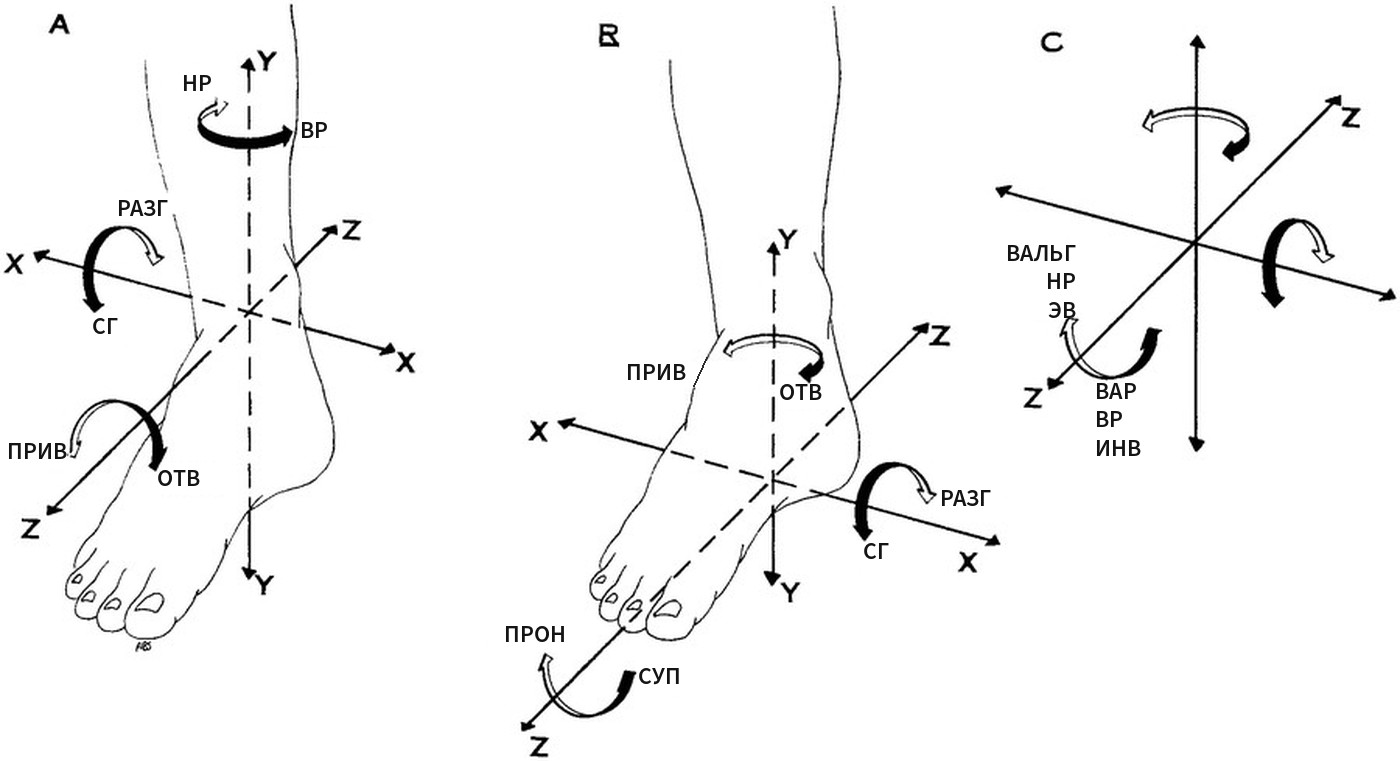
В рентгеностереофотограмметрическом исследовании Lundberg и соавт. на наклонной платформе (от 20° пронации до 20° супинации) наибольший объём движения приходился на таранно-ладьевидный сустав, за ним следовал подтаранный, причём в подтаранном суставе — преимущественно при супинации; суставы проксимальнее и дистальнее медиальной клиновидной кости также вносили значимый вклад [37]. Пронация и супинация стопы, таким образом, выполняются комплексом суставов, и подтаранный сустав не является в нём главным по объёму.
«Торсионный преобразователь»
Inman и Close сформулировали модель, в которой подтаранный сустав работает как торсионный преобразователь (torque converter): внутренняя ротация голени в начале опоры преобразуется в пронацию стопы, наружная ротация во второй половине опоры — в супинацию [29] (рис. 22). Модель объясняла, как стопа отвечает на ротацию голени, обусловленную движением таза и бедра, и почему пронация совпадает по времени со сгибанием колена после контакта пятки.
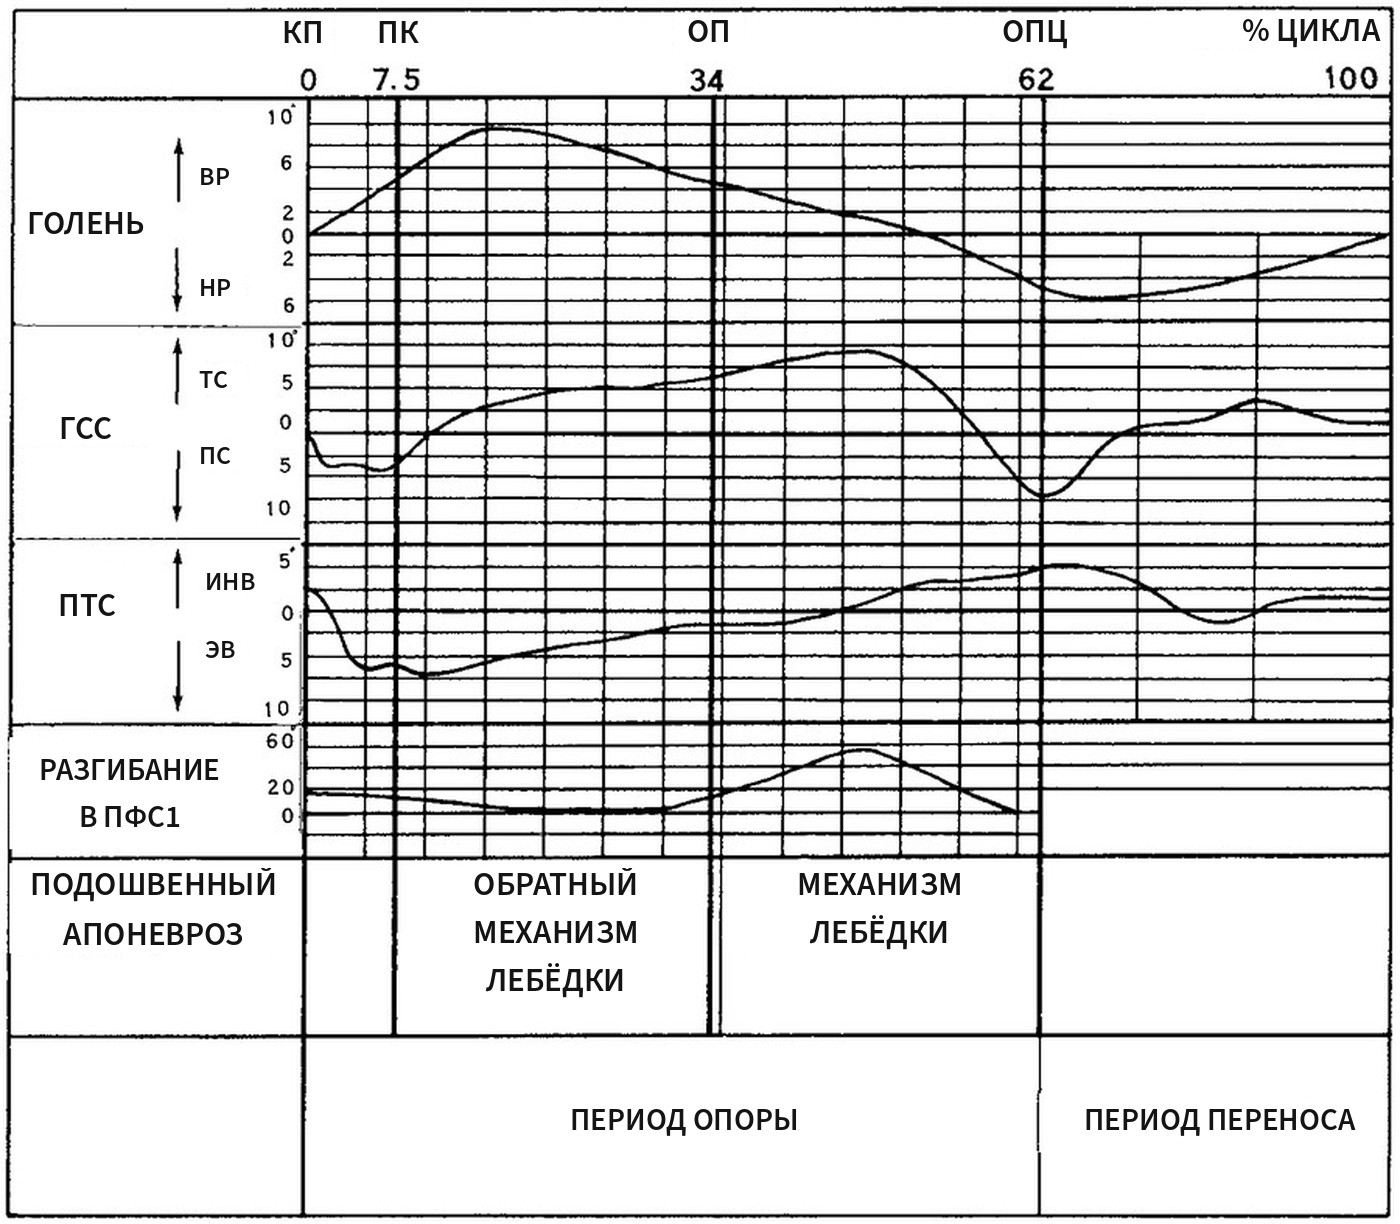
Количественные данные подтверждают связь, но показывают её неполноту и индивидуальность. Lundberg и соавт. при наклоне платформы зарегистрировали наружную ротацию голени в среднем на 0,2° на каждый градус супинации стопы [37]. Hintermann и соавт. на 14 кадаверных препаратах с нагрузкой показали асимметрию передачи: эверсия пяточной кости вызывала значимую внутреннюю ротацию большеберцовой кости, а внутренняя ротация большеберцовой кости эверсии пяточной кости не вызывала; величина передачи различалась между препаратами и зависела от нагрузки и положения стопы [38]. Авторы сделали вывод, что чрезмерная пронация опасна для коленного сустава только у людей с высокой передачей движения в голеностопном комплексе.
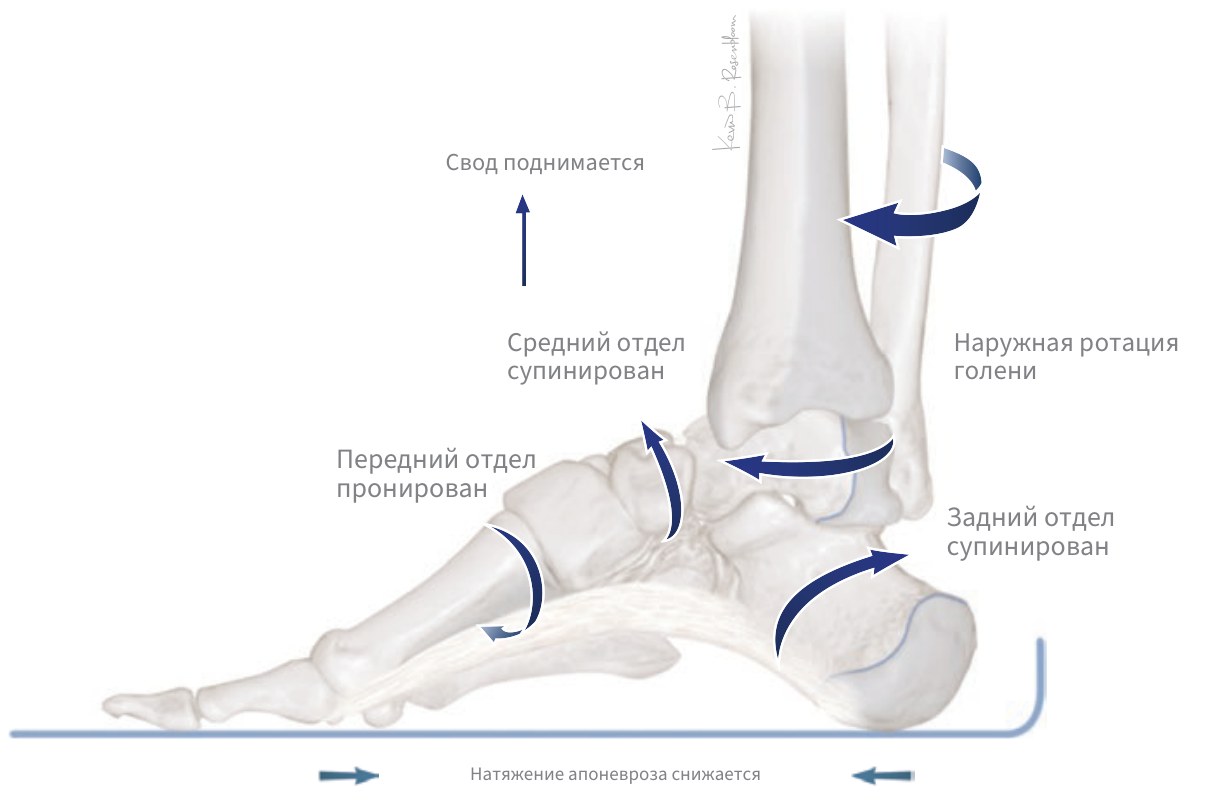
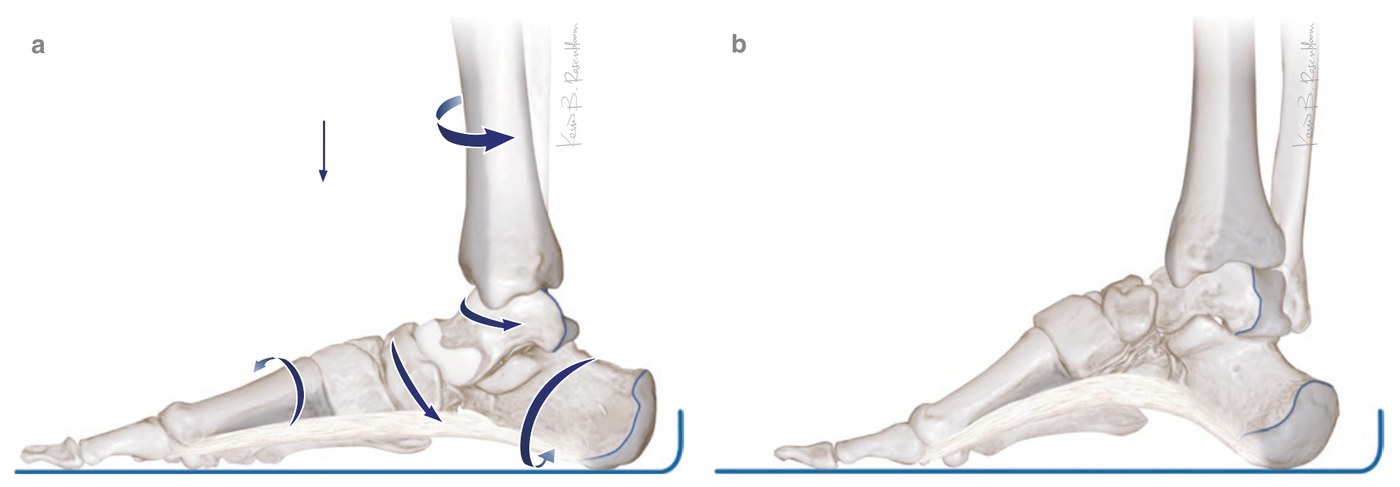
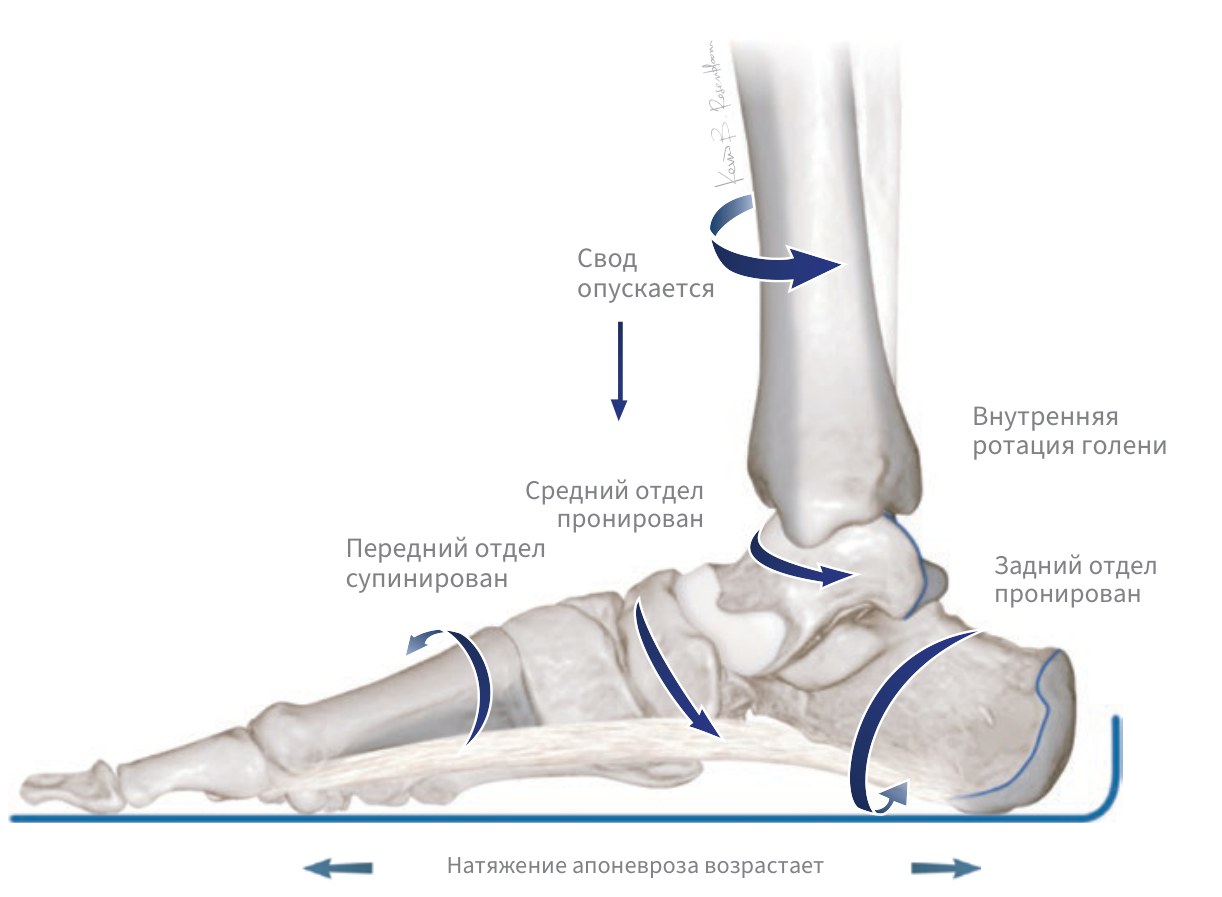
Иную трактовку предложил Sarrafian, рассматривавший стопу как скрученную пластину. При вертикальной нагрузке с наружной ротацией голени задний и средний отделы супинируются, передний пронируется, продольный свод поднимается, апоневроз расслабляется, и стопа становится более гибкой (рис. 23, 24); при нагрузке с внутренней ротацией задний и средний отделы пронируются, свод опускается, апоневроз натягивается, и стопа становится жёстче (рис. 25, 26) [39]. Эта модель противоречит классическому представлению о пронированной стопе как подвижной и супинированной как жёсткой; данных, которые позволили бы выбрать одну из моделей для ходьбы, пока недостаточно.
Сроки пронации в цикле
Подиатрическая модель Root (1977) предполагала пронацию подтаранного сустава от контакта пятки примерно до трети опоры, затем супинацию с достижением «нейтрального» положения к отрыву пятки; пронация, продолжающаяся дольше, считалась патологической [22]. Эта модель основывалась на визуальных наблюдениях и кадаверных исследованиях.
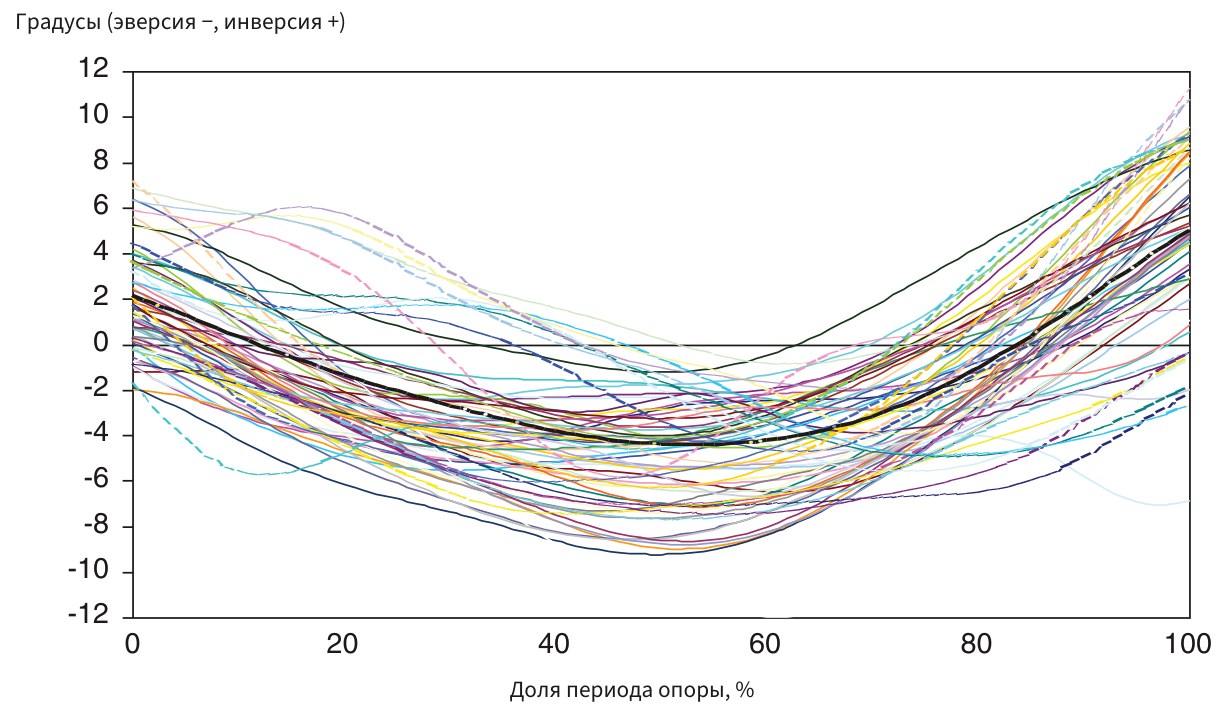
Кинематические исследования её не подтвердили (рис. 27). McPoil и Cornwall по двумерной видеосъёмке у 31 здорового добровольца показали, что движение заднего отдела в первые 60% цикла, по терминологии авторов, проходит между углами расслабленного стояния и стояния на одной ноге и не достигает нейтрального положения подтаранного сустава [40]. Youberg и соавт. с электромагнитной системой у 40 здоровых добровольцев установили, что при ходьбе используется 68,1% доступного пассивного диапазона эверсии и лишь 13,2% диапазона инверсии [41]: задний отдел при ходьбе работает вблизи предела эверсии.
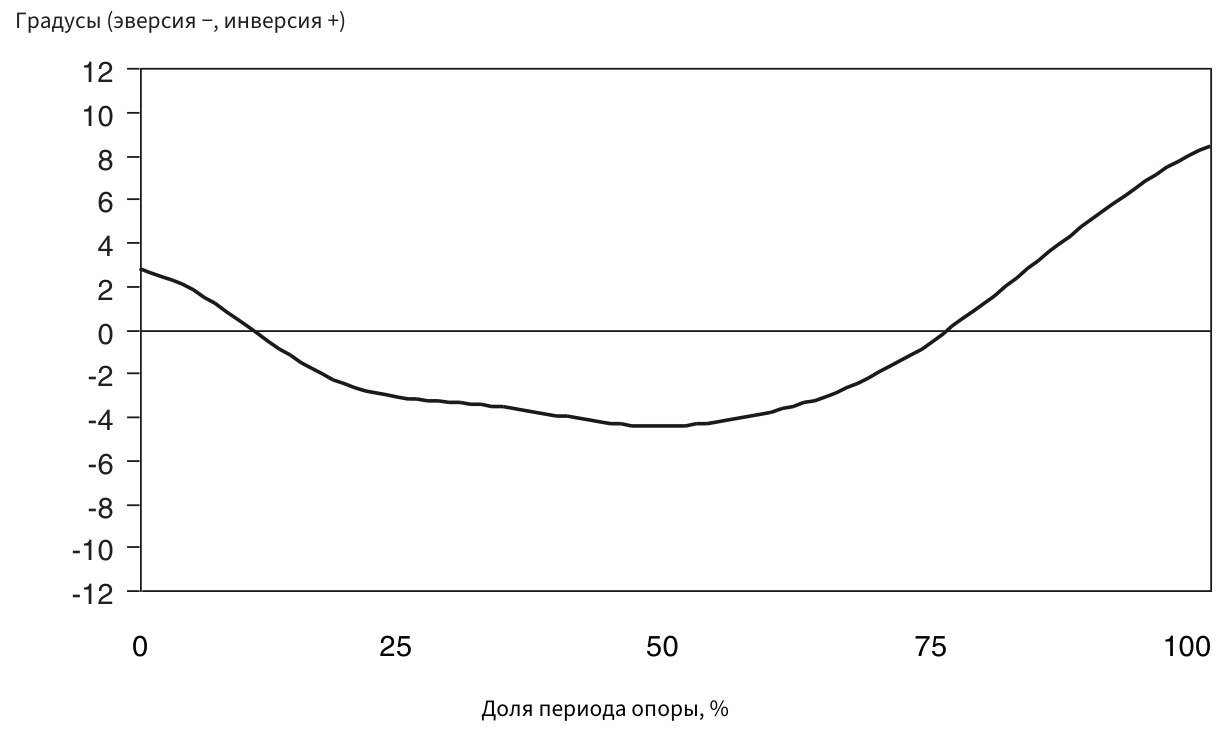
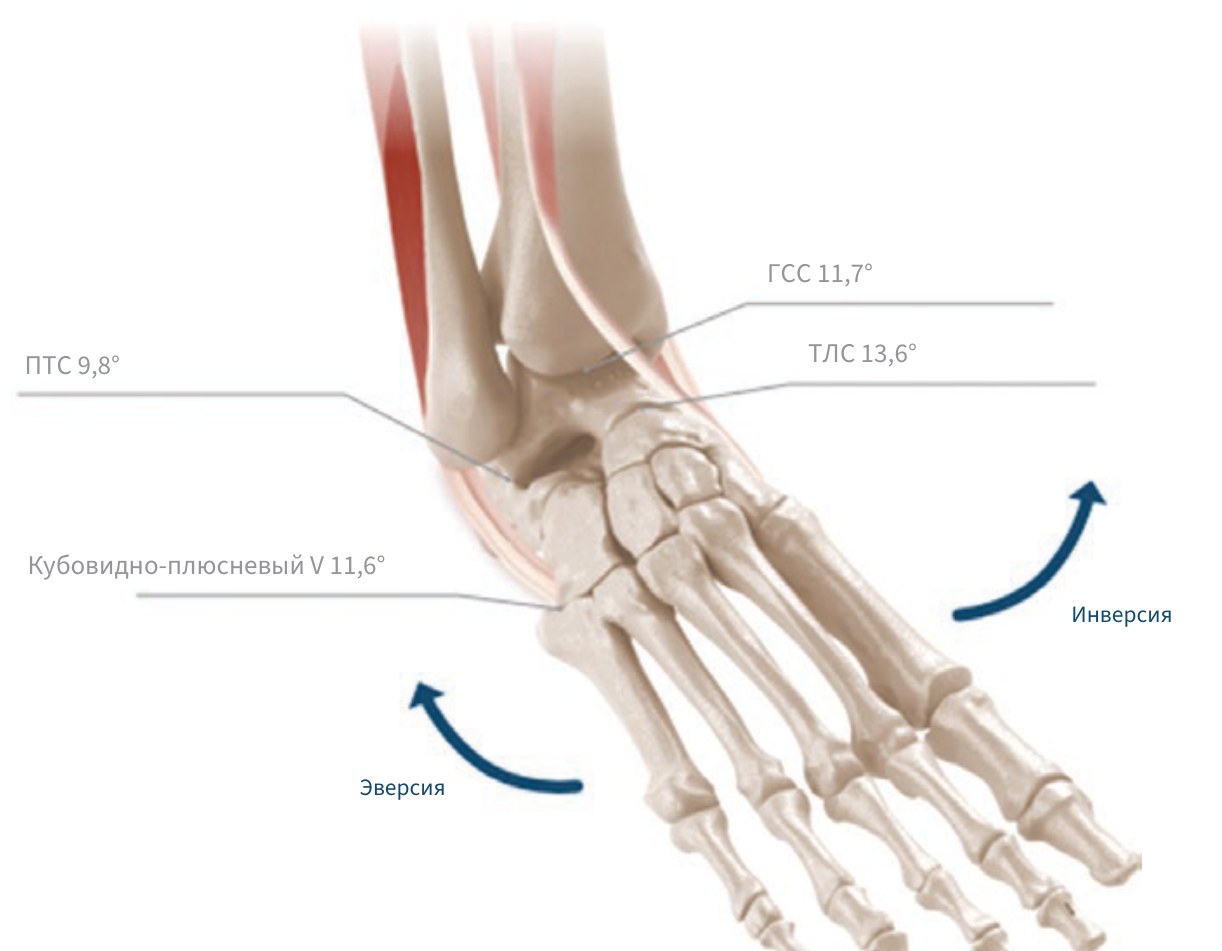
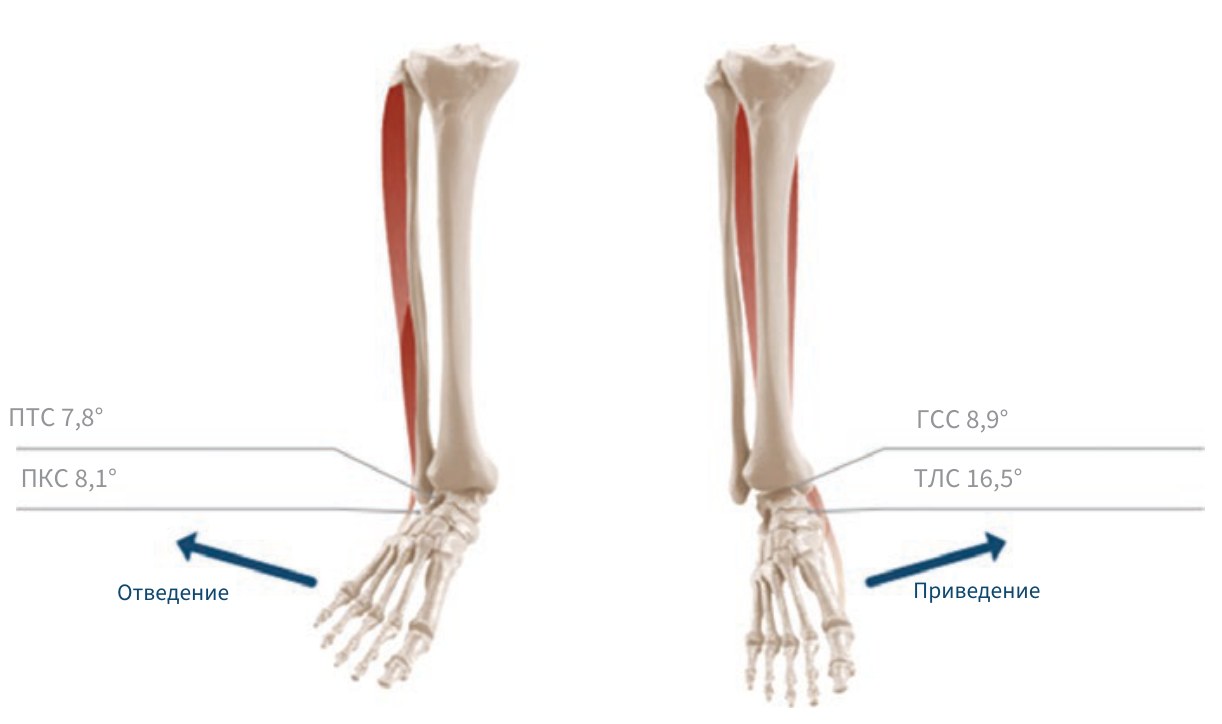
Исследования с костными спицами уточнили, какой сустав даёт фронтальное движение «заднего отдела». У Arndt и соавт. большая часть эверсии/инверсии приходилась на подтаранный сустав (8,3°), но вклад голеностопного сустава (6,3°) оказался значимым; объём отведения/приведения в подтаранном суставе (6,1°) авторы назвали неожиданно большим [5]. Lundgren и соавт. у шести добровольцев обнаружили, что движение в подтаранном суставе вариабельнее, чем ожидалось, а движение в таранно-ладьевидном суставе больше, чем в подтаранном [25]. По сводным данным двух исследований с костными спицами, фронтальный объём движения таранно-ладьевидного сустава составляет 13,6° (рис. 28), горизонтальный — 16,5° (рис. 29), что больше, чем в подтаранном суставе [22]. Флюороскопическое исследование de Asla и соавт. показало, что от середины опоры до отрыва пальцев внутренняя ротация (12,3 ± 8,3°) и инверсия (10,7 ± 3,8°) происходят в основном в подтаранном суставе, тогда как в начале опоры движение выполняет главным образом голеностопный сустав [32].
В исследовании Nester и соавт. на 100 здоровых добровольцах по пятисегментной модели стопы согласованность движения между суставами (coupling) подтверждалась непоследовательно, а характер движения различался от человека к человеку [42] (рис. 30). Единого «нормального» паттерна пронации, с которым можно сравнить пациента, по этим данным не существует.
Последствия артродеза ПТС
После моделированного артродеза подтаранного сустава в кадаверном исследовании Astion и соавт. сохранялось в среднем 26% движения таранно-ладьевидного сустава, 56% движения пяточно-кубовидного сустава и 46% экскурсии сухожилия задней большеберцовой мышцы [2]. Wülker и соавт. получили сходный результат: движение в таранно-ладьевидном суставе после артродеза подтаранного сустава снижалось примерно до трети, а движение в пяточно-кубовидном суставе значимо не уменьшалось [43]. Артродез подтаранного сустава, таким образом, частично выключает и таранно-ладьевидный сустав, но средний отдел сохраняет подвижность.
Значение для осмотра и планирования операции
Ось подтаранного сустава у конкретного пациента неизвестна и может отличаться от средней на десятки градусов, поэтому ни положение пятки, ни величина пассивной эверсии не позволяют точно предсказать поведение сустава при ходьбе. Положение пятки стоя и её коррекция при подъёме на носки («Осмотр заднего отдела стопы» ) характеризуют подвижность комплекса заднего отдела в целом. При артродезе подтаранного сустава теряется около трёх четвертей движения таранно-ладьевидного сустава, а экскурсия сухожилия задней большеберцовой мышцы снижается более чем вдвое. Модели «торсионного преобразователя» и «скрученной пластины» по-разному описывают, какое положение заднего отдела делает стопу жёсткой, поэтому выбор положения артродеза опирается на клинические результаты; ни одна из моделей для этого выбора не доказана.
Поперечный сустав предплюсны и жёсткость среднего отдела
Классическая модель «запирания»
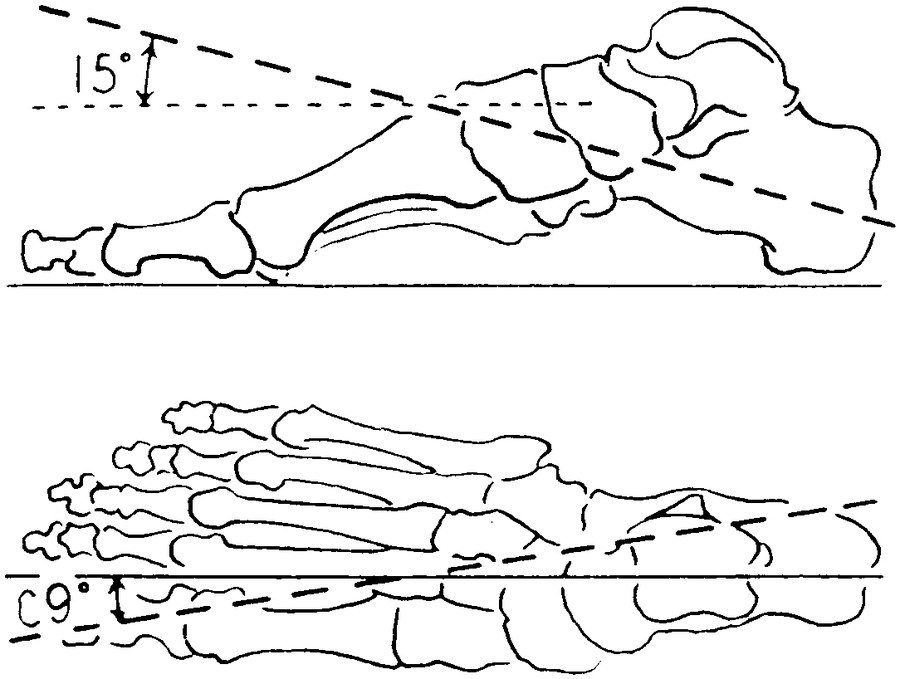
Поперечный сустав предплюсны (сустав Шопара, transverse tarsal joint, midtarsal joint) объединяет таранно-ладьевидный (ТЛС) и пяточно-кубовидный (ПКС) суставы. Manter описал для него две оси движения — продольную и косую [36] (рис. 31). На этой основе Elftman сформулировал модель «запирания»: при эверсии пяточной кости оси ТЛС и ПКС располагаются параллельно, и поперечный сустав предплюсны подвижен; при инверсии пяточной кости оси расходятся, движение в суставе блокируется, и средний отдел становится жёстким [44] (рис. 32). Модель объясняла, как стопа превращается из «подвижного адаптера», приспосабливающегося к опоре в начале опоры, в «жёсткий рычаг» для отталкивания: супинация подтаранного сустава во второй половине опоры «запирает» средний отдел.
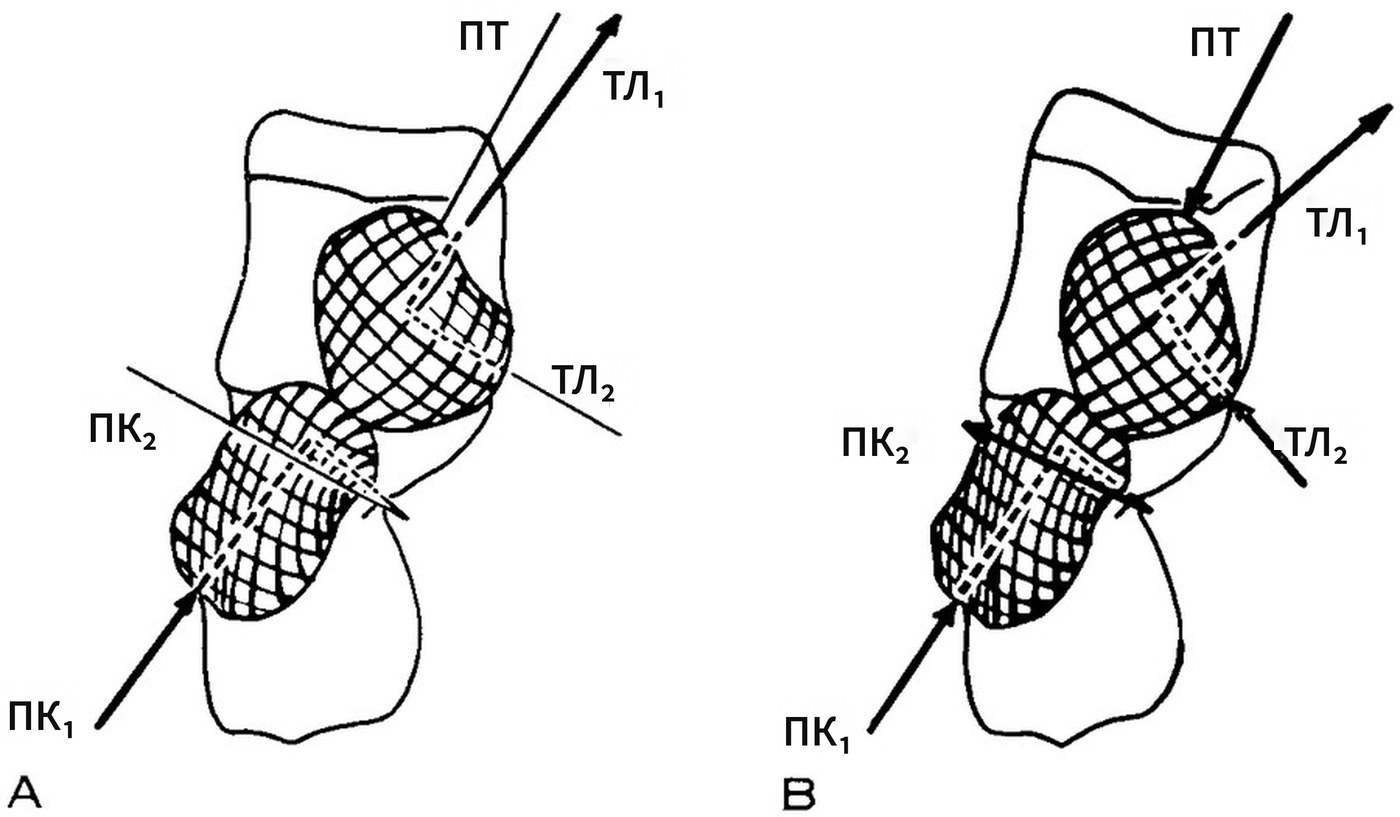
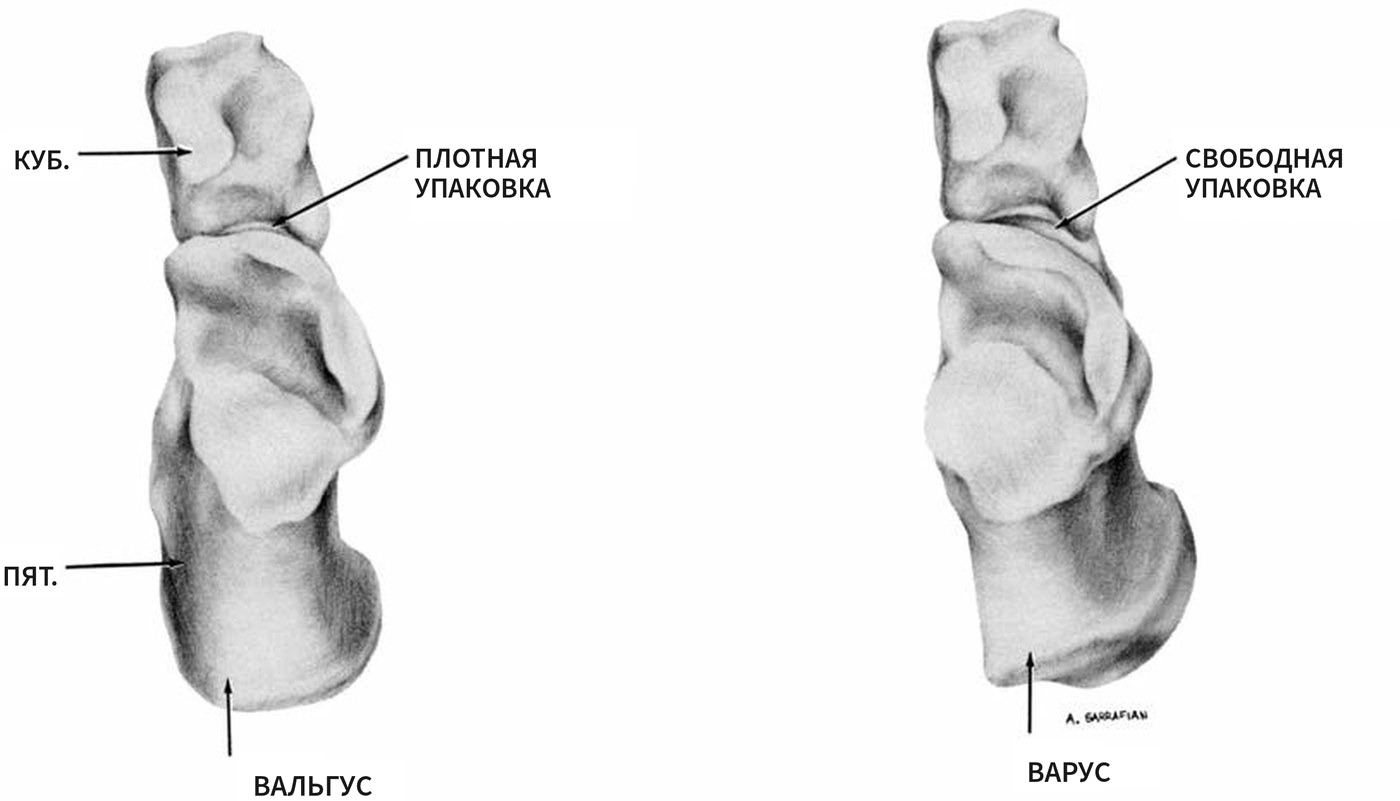
Bojsen-Møller предложил другой механизм стабилизации. Пяточно-кубовидный сустав у человека переходит в положение максимальной конгруэнтности (close-packed position) при пронации переднего отдела относительно заднего: суставные поверхности совпадают, а нависающий тыльный край пяточной кости останавливает движение кубовидной кости [45] (рис. 33). При отталкивании через косую ось стопа инвертирована, пяточно-кубовидный сустав разомкнут, и нагрузка проходит по латеральному краю стопы; при отталкивании через поперечную ось передний отдел функционально пронирован, поперечный сустав предплюсны стабилизирован, а апоневроз натягивается эффективнее [45]. В этой модели стабильность среднего отдела создаёт пронация переднего отдела, которую обеспечивает длинная малоберцовая мышца, тогда как у Elftman ту же функцию выполняет супинация заднего отдела.
Критика модели кинематическими исследованиями
Модель «запирания» проверялась на кадаверных препаратах и при ходьбе. Blackwood и соавт. на девяти препаратах с фиксированной к большеберцовой кости таранной костью показали, что сагиттальный объём движения I, II и V плюсневых костей значимо больше при максимальной эверсии пяточной кости, чем при максимальной инверсии; во фронтальной плоскости различий не было [46]. Эта работа подтвердила влияние положения заднего отдела на подвижность переднего, но ограничила его сагиттальной плоскостью и пассивным движением без нагрузки.
Динамические модели ходьбы дали другой результат. Nester и соавт. на 13 кадаверных стопах в модели ходьбы показали, что таранно-ладьевидный сустав подвижнее пяточно-кубовидного, объём движения между ладьевидной и клиновидными костями сопоставим с объёмом в таранно-ладьевидном суставе, а IV и V плюсневые кости подвижнее относительно кубовидной кости, чем I–III относительно клиновидных [9]. Okita и соавт. в кадаверной симуляции ходьбы с регистрацией мышечных сил зарегистрировали расхождение осей суставов среднего отдела при принятии нагрузки, однако суставы оставались податливыми при полном контакте стопы с опорой и ещё больше — при отталкивании, несмотря на расходящиеся оси [47]. Авторы пришли к выводу, что представление о «запирании» среднего отдела как источнике жёсткого рычага при отталкивании не подтверждается.
Антропологические исследования оспорили и саму уникальность жёсткого среднего отдела человека. DeSilva и соавт. у 671 человека нашли корреляцию пикового давления под латеральной частью среднего отдела с сагиттальным сгибанием в латеральных предплюсне-плюсневых суставах и с тыльным разгибанием ПФС1; низкий свод и пронация стопы объясняли 40% вариабельности давления под средним отделом [48]. Richie, обобщая эти работы, заключает, что модель костного «запирания» с расходящимися осями опровергнута, а жёсткость стопы при отталкивании создаётся мягкими тканями под управлением сенсомоторной системы [22]. Сторонники классической модели указывают, что влияние положения заднего отдела на подвижность переднего воспроизводится при пассивном осмотре [46]; противоречие снимается тем, что при ходьбе это влияние перекрывается работой связок и мышц.
Что делает стопу жёсткой
По современным данным, жёсткость среднего отдела создают несколько структур.
Подошвенный апоневроз. Huang и соавт. на 12 кадаверных стопах с осевой нагрузкой до 690 Н последовательно пересекали апоневроз, подошвенные связки и пружинную связку: наибольший вклад в стабильность свода вносил апоневроз, затем подошвенные связки и пружинная связка; пересечение апоневроза снижало жёсткость свода на 25% [14].
Поперечный свод. Venkadesan и соавт. показали, что поперечный свод предплюсны через межплюсневые ткани обеспечивает более 40% продольной жёсткости стопы; принцип авторы сравнили с бумажной купюрой, которая становится жёсткой, если её согнуть поперёк [3].
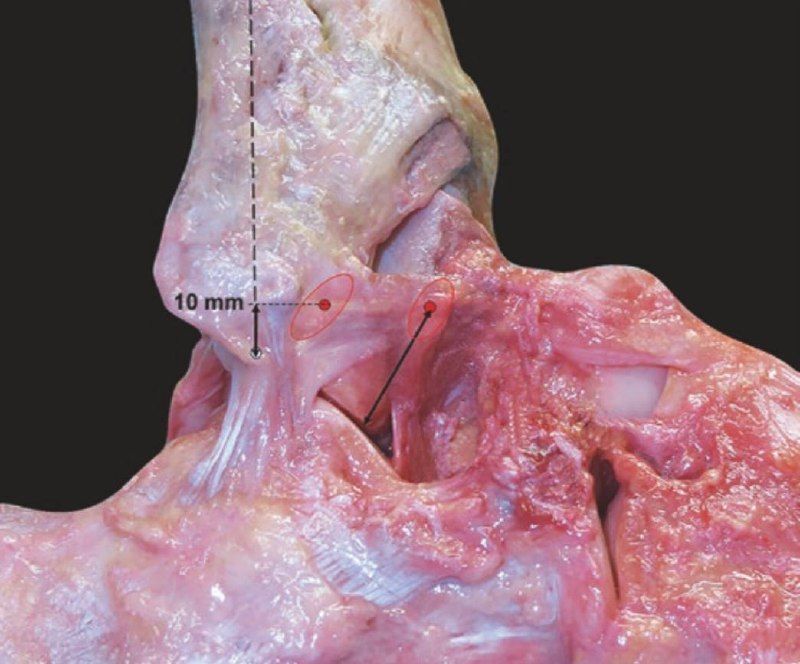
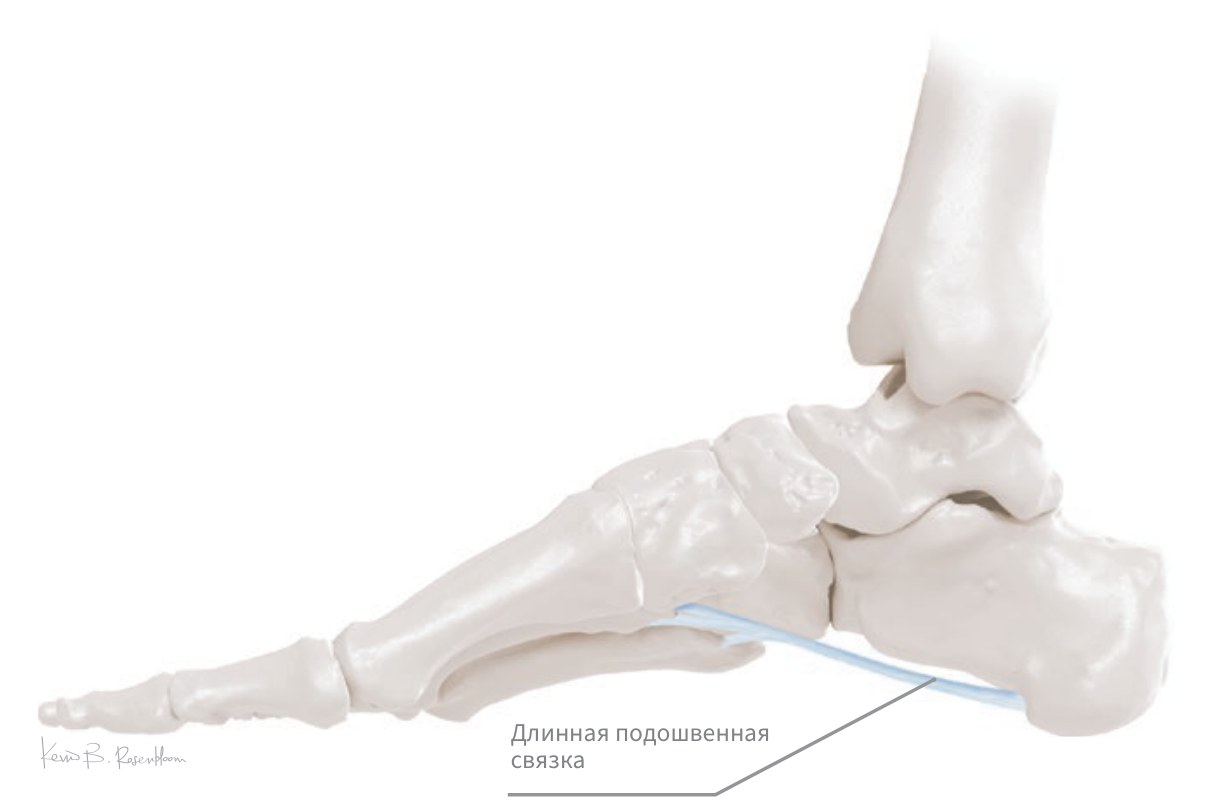
Пружинная связка. Jennings и Christensen на кадаверных препаратах показали, что после пересечения комплекса пружинной связки (spring ligament, подошвенной пяточно-ладьевидной связки) в моделированной средней опоре ладьевидная кость сгибается в подошвенную сторону, приводится и эвертируется, головка таранной кости опускается и приводится, а натяжение сухожилия задней большеберцовой мышцы эту нестабильность не компенсирует [49]. Авторы назвали комплекс пружинной связки главным стабилизатором свода в средней опоре.
Собственные мышцы стопы. Блокада большеберцового нерва, выключающая подошвенные собственные мышцы, у здоровых добровольцев лишь немного увеличивала сжатие свода при контролируемой нагрузке и не меняла жёсткость свода при ходьбе и беге; при этом дистальные суставы стопы не удавалось достаточно стабилизировать для нормального отталкивания, частота шагов увеличивалась, а мощность в тазобедренном суставе возрастала компенсаторно [50]. Собственные мышцы, таким образом, мало влияют на жёсткость свода и важны для стабилизации плюснефаланговых суставов при отталкивании.
Перелом среднего отдела
Перелом среднего отдела (midfoot break) — тыльное сгибание в суставах среднего отдела после отрыва пятки, при котором задний отдел поднимается, а передний остаётся на опоре. У человекообразных обезьян он регистрируется в каждом шаге [45] (рис. 34). У человека перелом среднего отдела встречается как вариант нормы и связан с низким сводом и пронацией [48]. Клинически он наблюдается при несостоятельности задней большеберцовой мышцы и пружинной связки и как компенсация укорочения икроножной мышцы, когда ограниченное тыльное сгибание в голеностопном суставе замещается движением в среднем отделе (раздел «Укорочение икроножной мышцы»).
Значение для артродезов ТЛС, двойного и тройного
Данные о движении после артродезов заднего отдела прямо определяют выбор объёма операции. В кадаверном исследовании Astion и соавт. любая комбинация моделированных артродезов, включавшая таранно-ладьевидный сустав, ограничивала движение в оставшихся суставах комплекса примерно до 2° и сохраняла 25% экскурсии сухожилия задней большеберцовой мышцы [2]. Изолированный артродез пяточно-кубовидного сустава мало влиял на подвижность подтаранного сустава, сохранял в среднем 67% движения таранно-ладьевидного сустава и 73% экскурсии сухожилия задней большеберцовой мышцы [2]. Wülker и соавт. подтвердили, что таранно-ладьевидный сустав — ключевой для движения заднего отдела; в их серии двойной артродез (ТЛС и ПКС) снижал движение в подтаранном суставе до четверти, но сохранял его в значимом объёме, тогда как артродез пяточно-кубовидного сустава на движение в остальных суставах значимо не влиял [43].
Выключение заднего отдела переносит нагрузку на голеностопный сустав и суставы медиальной колонны. Saltzman и соавт. обследовали 67 стоп через 25 и 44 года после тройного артродеза, выполненного в молодом возрасте: ко второму осмотру дегенеративные изменения голеностопного сустава были у всех, тогда как при первом осмотре 31% голеностопных суставов изменений не имели; сходное прогрессирование отмечено в ладьевидно-клиновидных и предплюсне-плюсневых суставах; при этом 95% пациентов были удовлетворены результатом [51].
На практике это означает, что артродез таранно-ладьевидного сустава по объёму выключенного движения близок к тройному артродезу: он фиксирует весь комплекс заднего отдела и почти полностью выключает функцию задней большеберцовой мышцы, поэтому транспозиция сухожилия в сочетании с ним теряет смысл как источник активного движения. Артродез пяточно-кубовидного сустава сохраняет значительную часть движения заднего отдела. Выбор между изолированным артродезом таранно-ладьевидного, двойным и тройным артродезом определяется состоянием подтаранного и пяточно-кубовидного суставов и необходимой коррекцией; по объёму сохранённого движения эти варианты различаются мало. После любого из них ладьевидно-клиновидный, предплюсне-плюсневые и голеностопный суставы получают дополнительную нагрузку, и их исходное состояние влияет на отдалённый результат.
Своды и подошвенный апоневроз
Ферменная модель
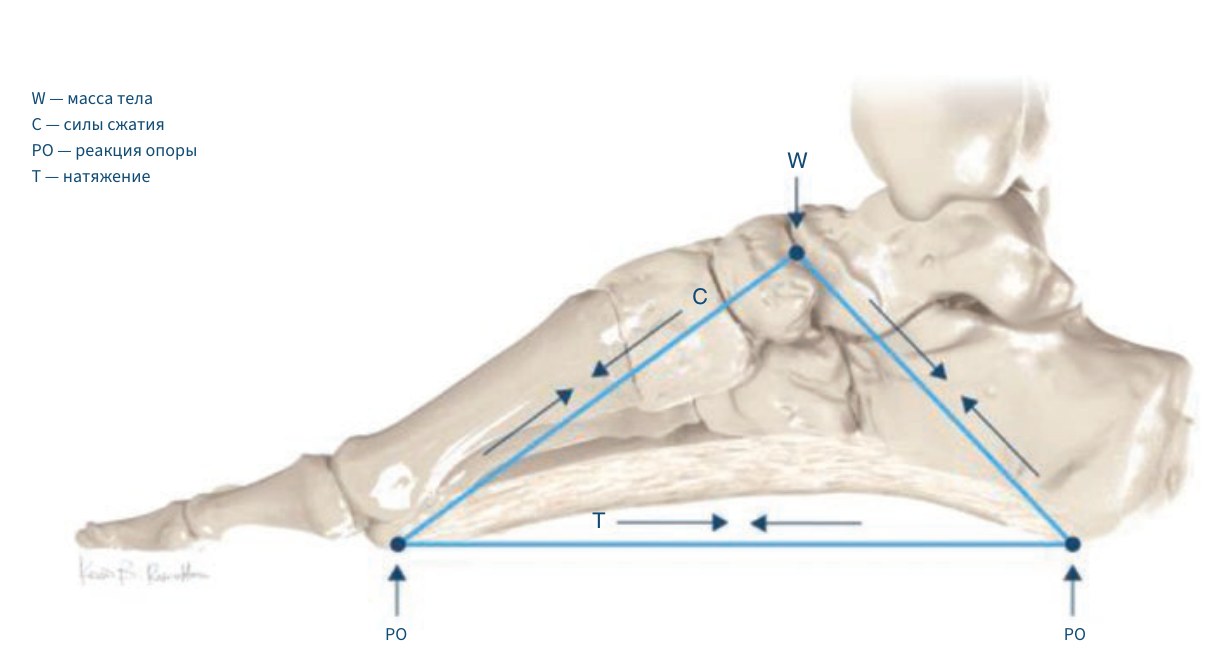
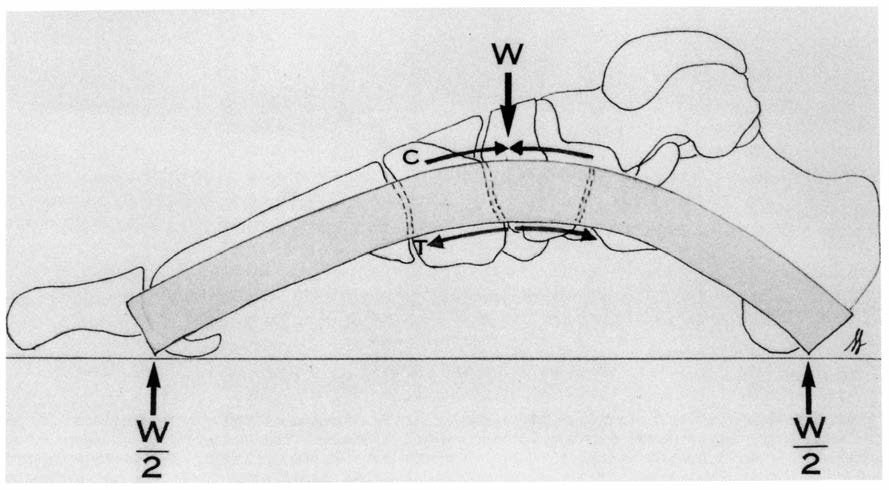
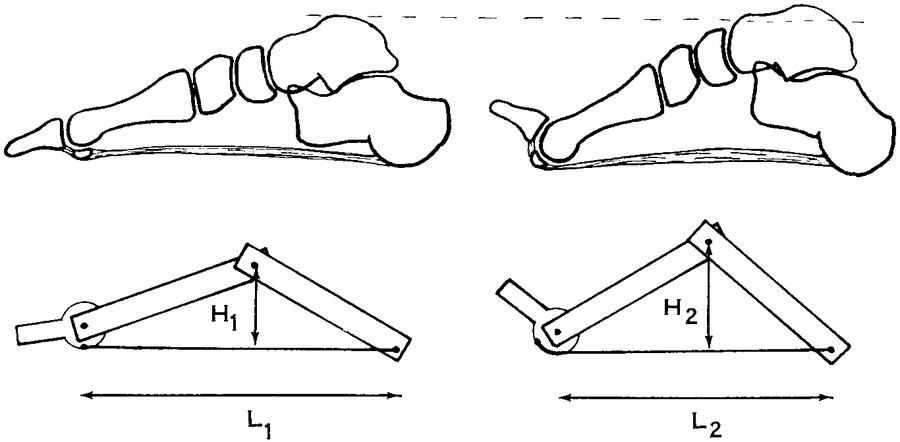
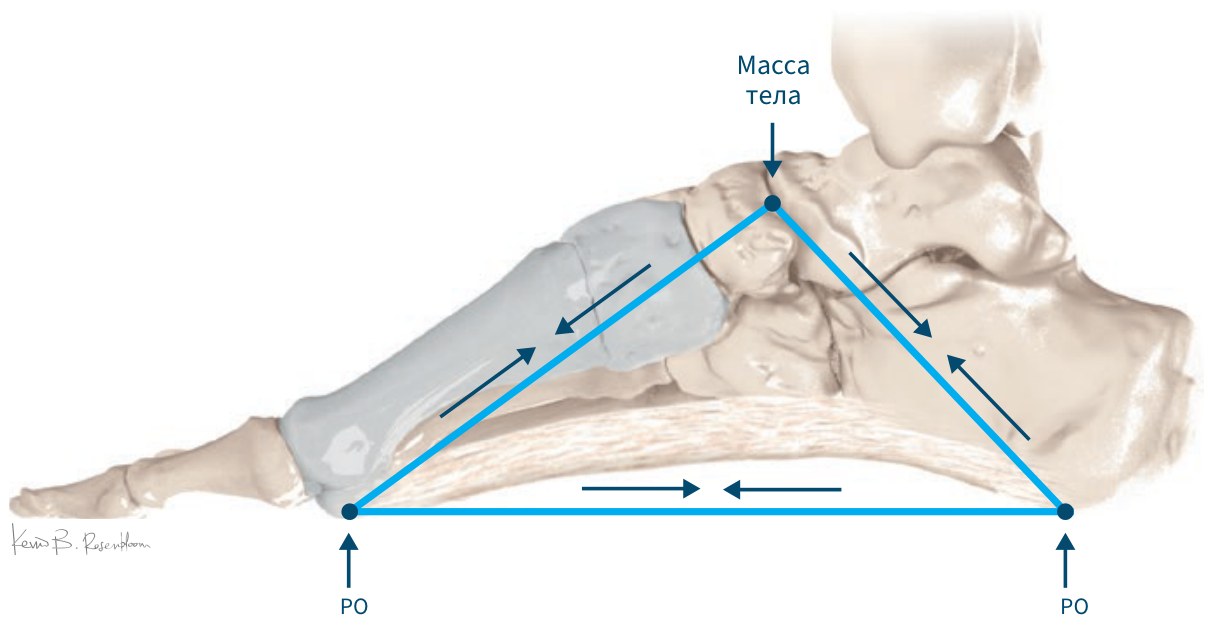
Продольный свод стопы в механических моделях описывается как ферма (truss): две балки — задняя (пяточная кость) и передняя (плюсневые кости с предплюсной) — соединены в вершине свода и стянуты снизу затяжкой (tie-rod), роль которой выполняет подошвенный апоневроз (рис. 35). Sarrafian показал, что при вертикальной нагрузке через большеберцово-таранный столб на тыльной поверхности стопы возникает сжатие, на подошвенной — растяжение (рис. 36), и апоневроз как затяжка снимает растягивающие напряжения с костей; натяжение апоневроза в положении стоя нарастает при наклоне голени вперёд и при разгибании пальцев [39] (рис. 37). Латеральную колонну, где апоневроз развит слабее, стягивают длинная и короткая подошвенные связки [14] (рис. 38).
Механизм лебёдки
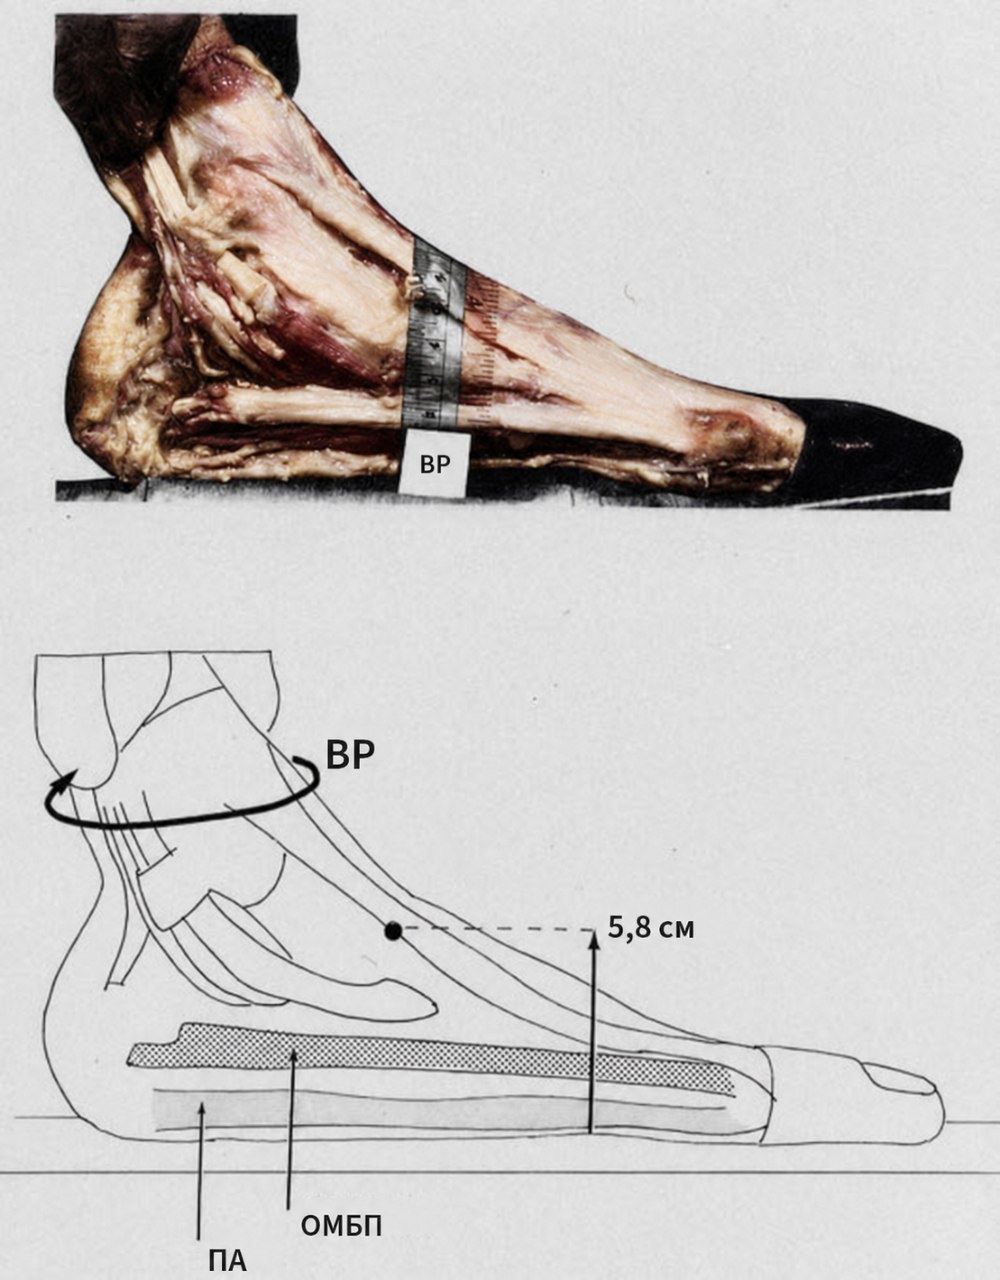
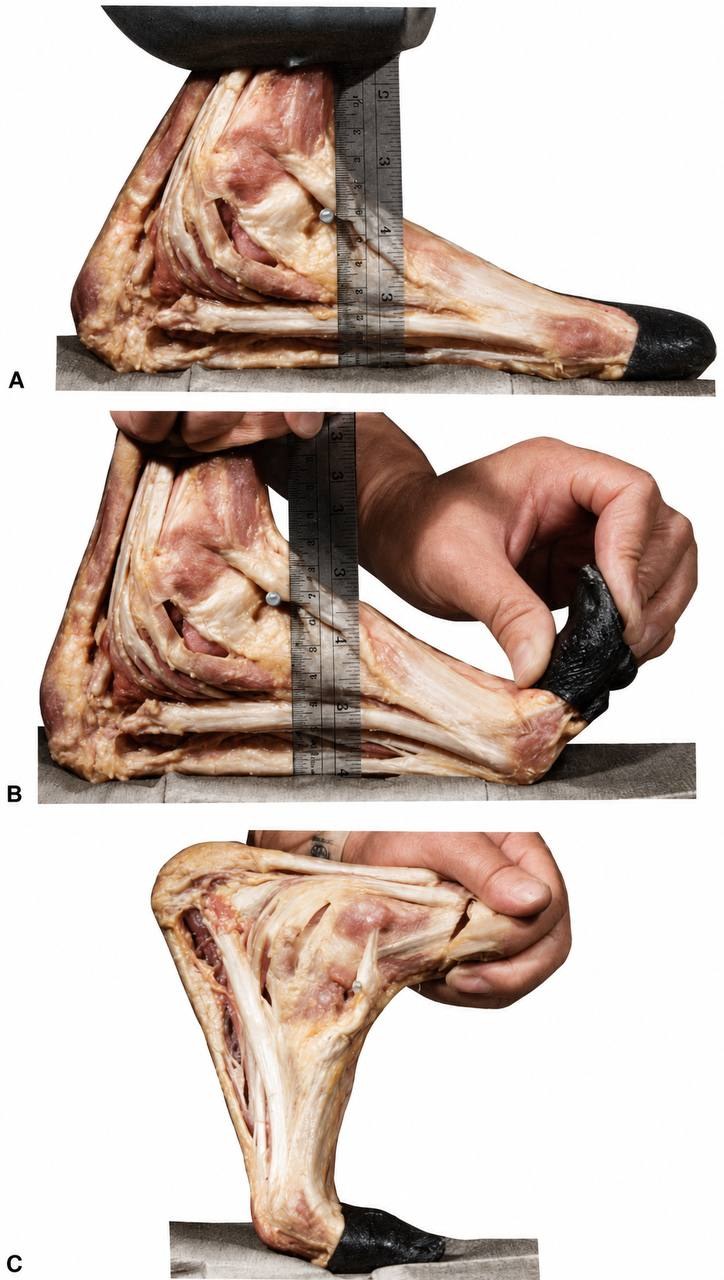
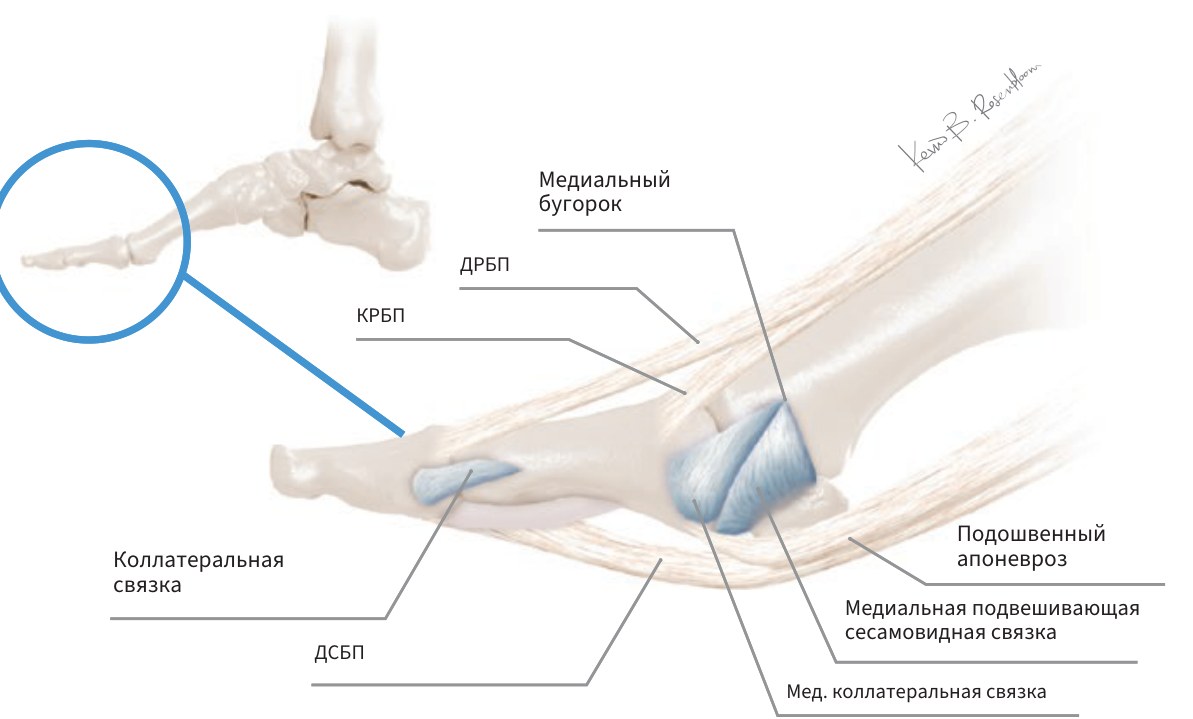
Hicks описал механизм лебёдки (windlass mechanism): при тыльном разгибании пальцев апоневроз, прикреплённый к основаниям основных фаланг через подошвенные пластинки (рис. 39), наматывается на головки плюсневых костей, как трос на барабан лебёдки (рис. 40); расстояние между пяточной костью и головками плюсневых костей уменьшается, свод поднимается, задний отдел инвертируется, голень ротируется наружу [52] (рис. 41). Механизм объясняет, как разгибание пальцев при отрыве пятки повышает жёсткость стопы перед отталкиванием. Bojsen-Møller связал эффективность лебёдки с осью отталкивания: при отталкивании через ПФС1 и ПФС2 радиус «барабана» больше, и апоневроз натягивается сильнее [45].
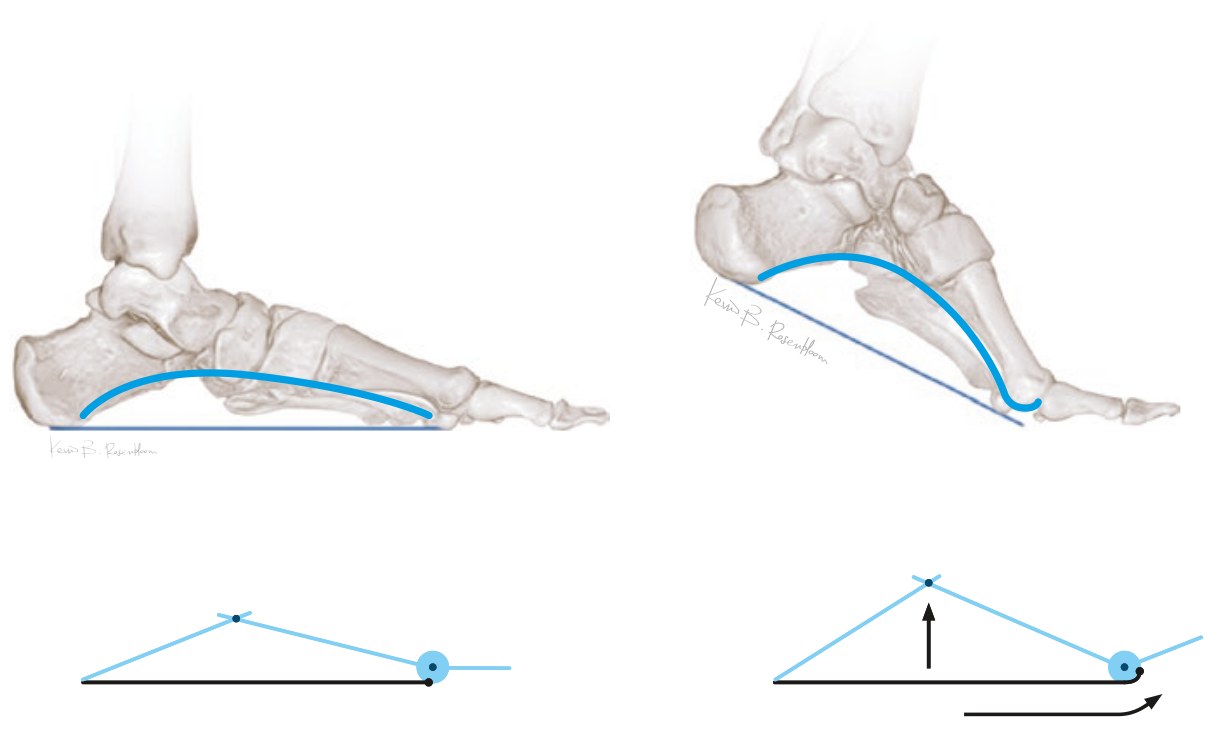
Обратный механизм лебёдки (reverse windlass) описывает ту же связь в противоположном направлении (рис. 42): опускание свода под нагрузкой натягивает апоневроз, и он сгибает пальцы в подошвенную сторону, прижимая их к опоре. Натяжение апоневроза, нарастающее при наклоне голени вперёд под нагрузкой [39], и предварительное натяжение апоневроза уже в начале опоры [26] согласуются с этим механизмом.
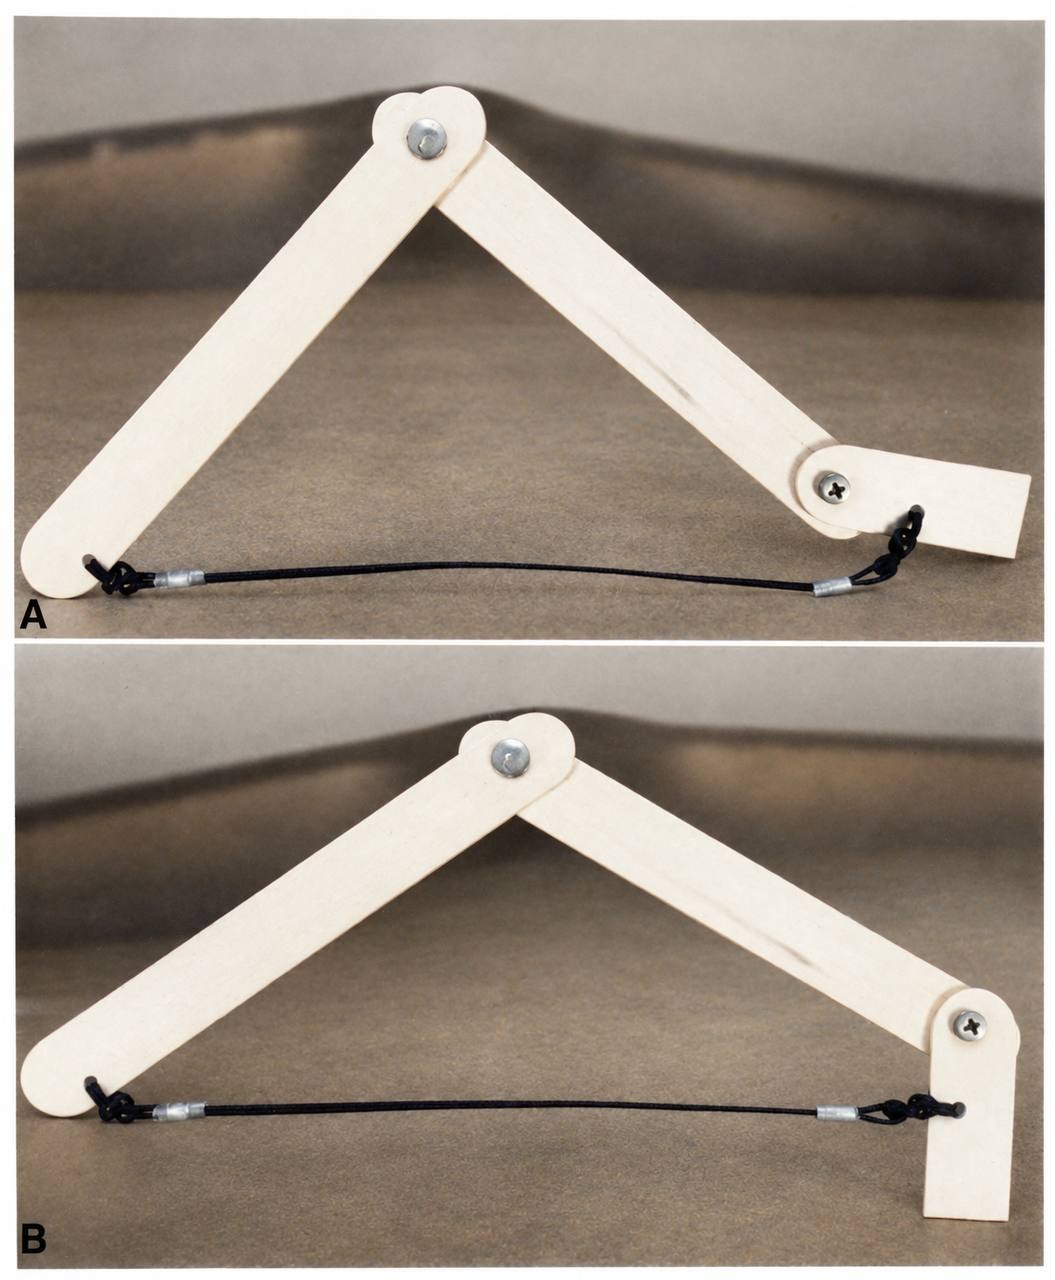
Количественные данные уточнили модель Hicks. В кадаверной модели ходьбы натяжение апоневроза достигало максимума в поздней части опоры (96 ± 36% массы тела) и коррелировало с силой ахиллова сухожилия: апоневроз передаёт силу трёхглавой мышцы на передний отдел [13]. Welte и соавт., напротив, при фиксированном тыльном разгибании плюснефаланговых суставов на 30° наблюдали у девяти добровольцев большее удлинение свода при динамическом сжатии, больше поглощённой и рассеянной энергии, чем без включения лебёдки [53]. Авторы объяснили это изменением оси вращения среднего отдела, которое выводит структуры свода ближе к их длине покоя. По этим данным включение лебёдки меняет условия упругой работы свода, и прямого ужесточения свода при этом не наблюдалось.
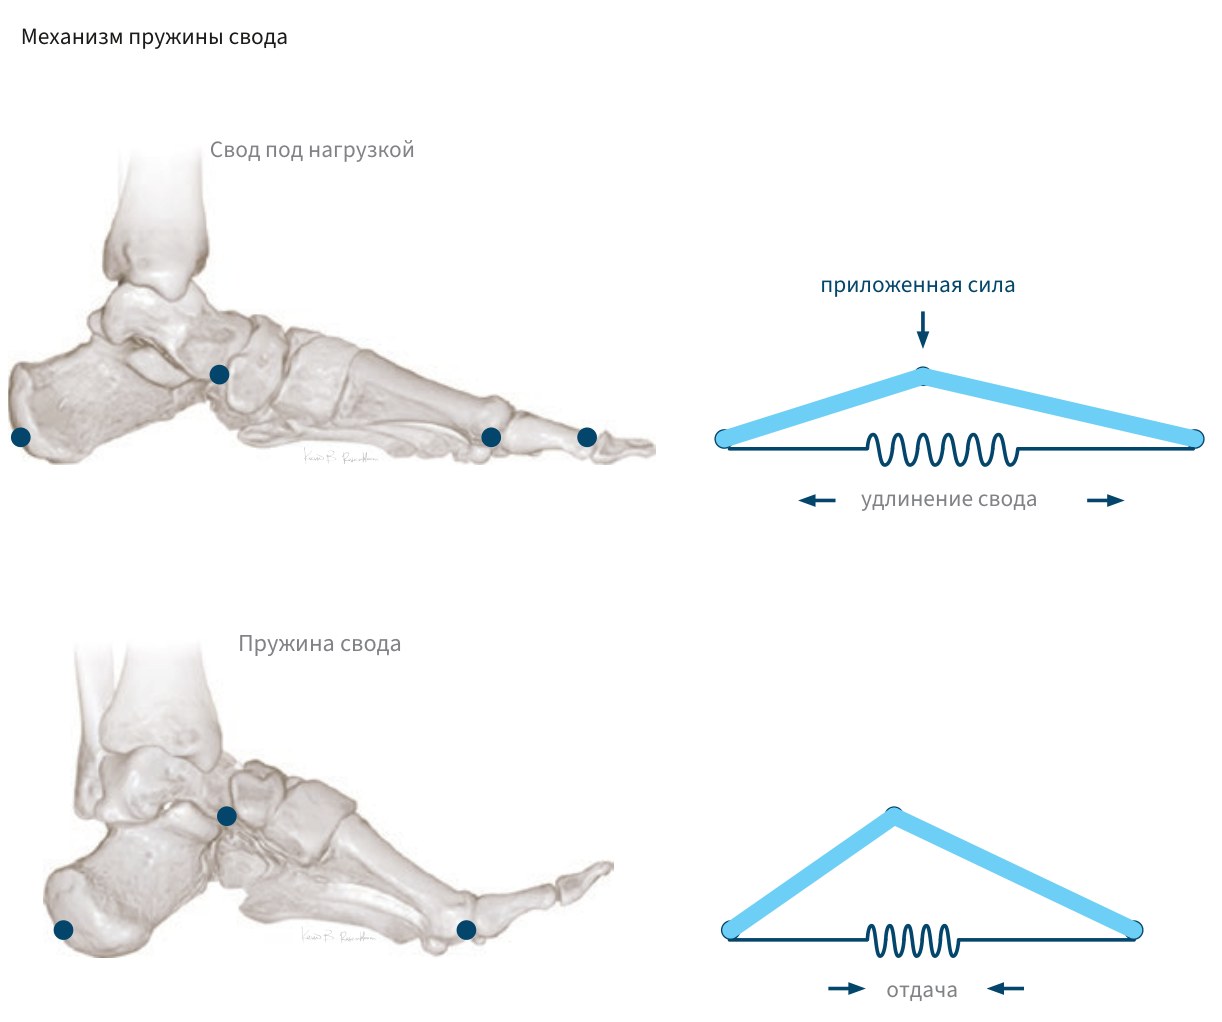
Пружина свода
Ker и соавт. показали, что продольный свод при беге работает как пружина (рис. 43): в первой половине опоры его структуры растягиваются и накапливают упругую энергию, во второй половине отдают её при упругой отдаче [54]. Энергосберегающая роль свода проверена Stearne и соавт.: стелька, ограничивавшая сжатие свода примерно на 80%, увеличивала энергозатраты при беге со скоростью 2,7 м/с на 6,0%, но не меняла их при ходьбе и при беге в гору [55]. Пружина свода, таким образом, важна при беге и вносит меньший вклад при ходьбе.
Вклад связок и собственных мышц
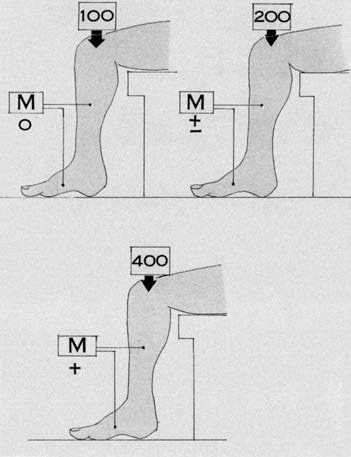
Иерархия пассивных стабилизаторов свода установлена в работе Huang и соавт.: подошвенный апоневроз, затем подошвенные связки, затем пружинная связка [14]. Пружинная связка остаётся главным стабилизатором головки таранной кости в средней опоре, и натяжение задней большеберцовой мышцы после её пересечения нестабильность не устраняет [49]. Вклад поперечного свода, превышающий 40% продольной жёсткости [3], указывает, что жёсткость стопы определяется не только продольным сводом. При статической нагрузке свод удерживают прежде всего связки и кости, а мышцы голени включаются лишь при большой нагрузке (рис. 44).
Собственные мышцы стопы при ходьбе активны преимущественно во второй половине опоры [21]. Их выключение блокадой большеберцового нерва мало меняет жёсткость свода, но нарушает стабилизацию пальцев при отталкивании [50].
Что теряется при фасциотомии апоневроза
Рассечение апоневроза снижает жёсткость свода на 25% [14]. В кадаверной модели конечной опоры Sharkey и соавт. показали, что пересечение медиальной половины центрального пучка мало влияет на нагрузку переднего отдела, тогда как пересечение всего центрального пучка или полное отсечение апоневроза от пяточной кости смещает давление с пальцев под головки плюсневых костей и увеличивает изгиб II плюсневой кости; полная фасциотомия увеличивала деформацию тыльного кортикального слоя II плюсневой кости более чем на 80% [15]. По конечно-элементной модели Cheung и соавт., частичное и полное рассечение апоневроза снижают высоту свода без полного его коллапса даже при дополнительном пересечении длинной подошвенной связки, но увеличивают деформацию подошвенных связок и напряжения в костях среднего отдела и плюсневых костях; авторы связали это с риском тыльно-латеральной боли в среднем отделе [56].
Клинически последствия полной фасциотомии невелики по рентгенометрии и заметны по жалобам. В серии De Prado и соавт. (62 стопы, чрескожная полная фасциотомия, наблюдение в среднем 57 месяцев) угол наклона пяточной кости снизился с 20,2° до 19,3°, в 40,3% стоп он не изменился; боль в латеральной колонне отмечена в 6,4% стоп [57].
Значение для осмотра и планирования операции
Механизм лебёдки проверяется при осмотре пассивным тыльным разгибанием первого пальца стоя: подъём свода и инверсия пятки показывают, что апоневроз и ПФС1 работают («Клинический осмотр стопы» ). При подошвенном фасциите выбор между частичным и полным рассечением апоневроза учитывает, что полное рассечение снижает жёсткость свода, перераспределяет нагрузку на головки плюсневых костей и увеличивает изгиб II плюсневой кости. Операции, укорачивающие расстояние от пяточной кости до головок плюсневых костей (укорачивающие остеотомии, артродез ПФС1 в разгибании), меняют натяжение апоневроза и работу лебёдки. При плосковальгусной деформации состояние пружинной связки определяет, достаточно ли сухожильной пластики: функцию разорванной связки сухожилие задней большеберцовой мышцы не заменяет.
Первый луч и передний отдел в отталкивании
Движение первого луча и его ось
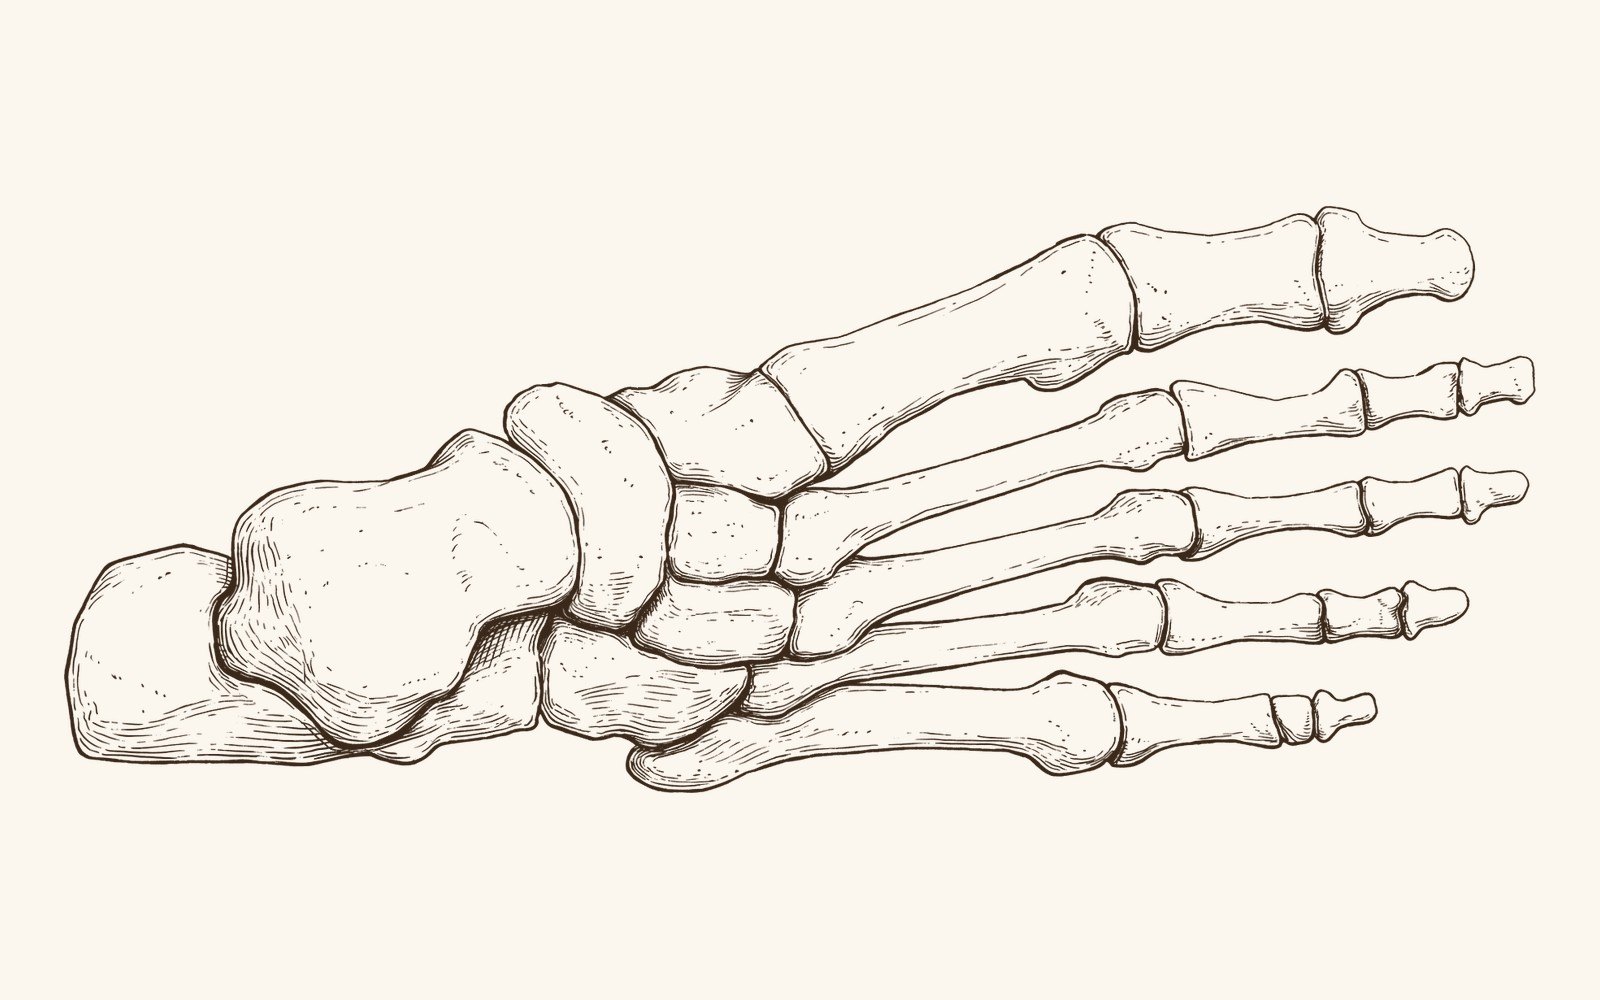
Первый луч включает первую плюсневую и медиальную клиновидную кости (рис. 45); функционально к нему относятся ладьевидно-клиновидный сустав и первый плюснеклиновидный сустав (ПлКС1). Hicks описал ось движения первого луча как косую (рис. 46): тыльное сгибание луча сопровождается его инверсией, подошвенное — эверсией [58]. Roling и соавт. на кадаверных препаратах при пассивном движении первого луча установили, что ладьевидно-клиновидный сустав даёт в среднем 50% сагиттального объёма, ПлКС1 — 41%, таранно-ладьевидный — 9%; моделированный артродез любого из этих суставов значимо уменьшал подвижность первого луча [10]. Wanivenhaus и Pretterklieber на 100 препаратах показали, что отведение и приведение в ПлКС1 есть лишь примерно в 10% случаев, а эверсия в среднем на 6,2° сочетается с тыльным смещением суставной поверхности первой плюсневой кости на 2,6 мм [59].
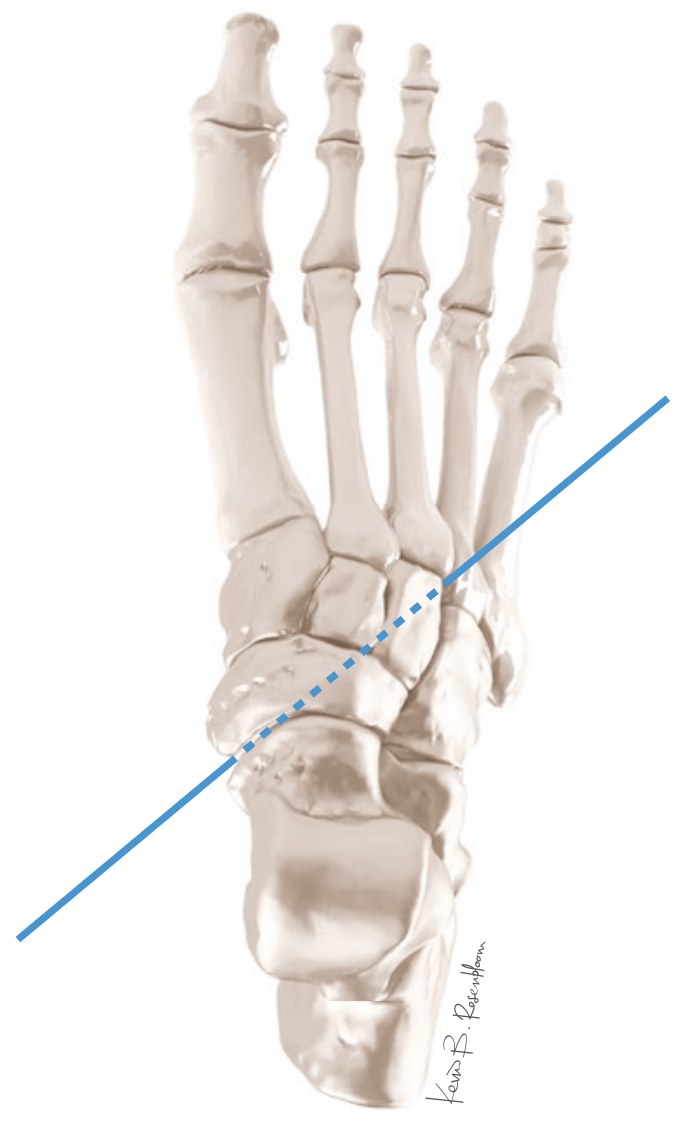
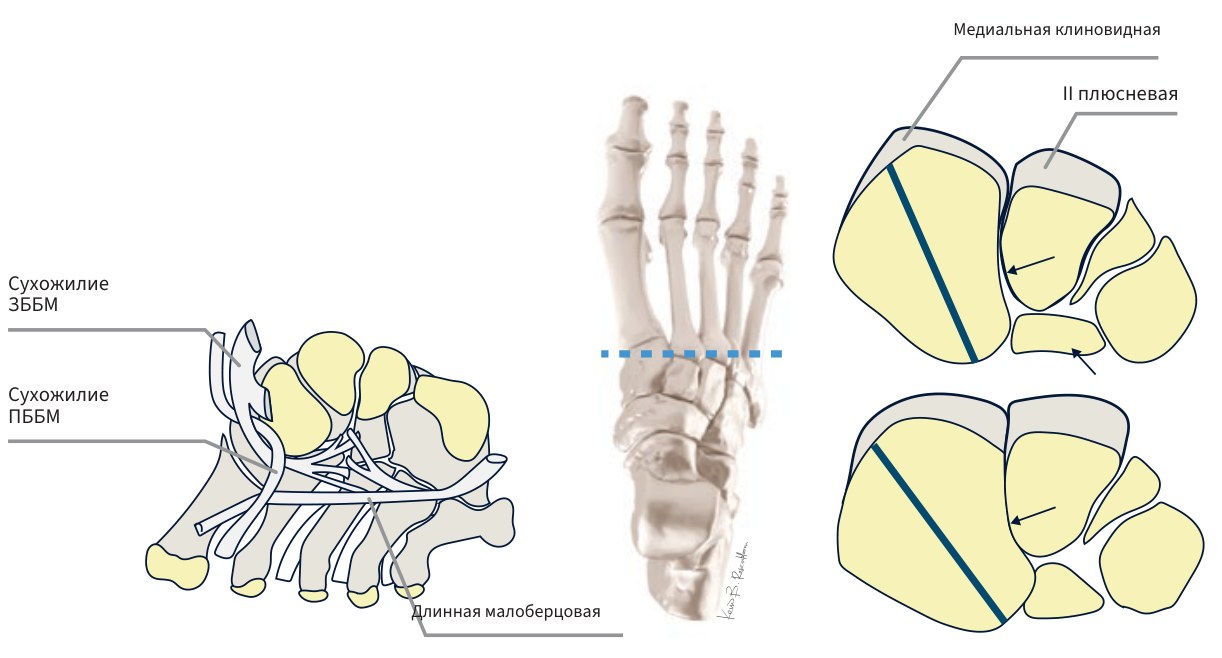
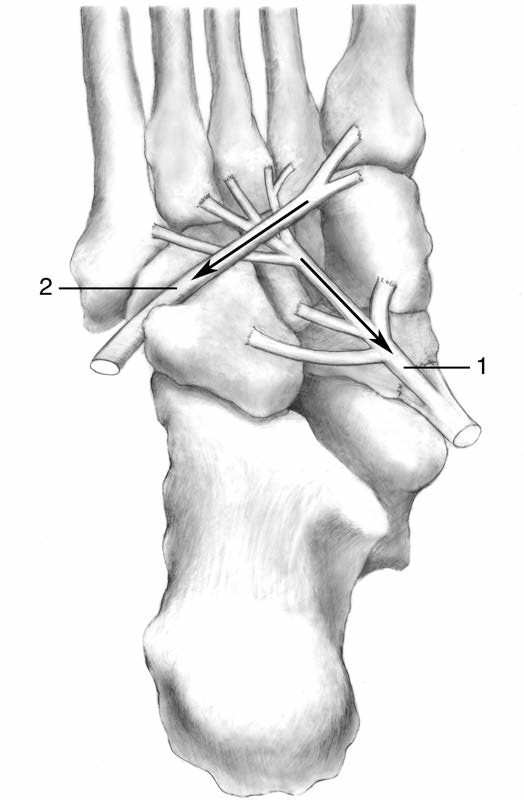
Исследования с костными спицами подтвердили, что движение между первой плюсневой и медиальной клиновидной костями меньше, чем между пятой плюсневой и кубовидной [25]. Длинная малоберцовая мышца стабилизирует первый луч: в кадаверной модели средней опоры её натяжение вызывало значимую эверсию медиальной колонны и меньшие изменения в сагиттальной и горизонтальной плоскостях, что авторы назвали эверсионным «запиранием» первого луча [60] (рис. 47, 48).
Тыльное разгибание ПФС1 при ходьбе
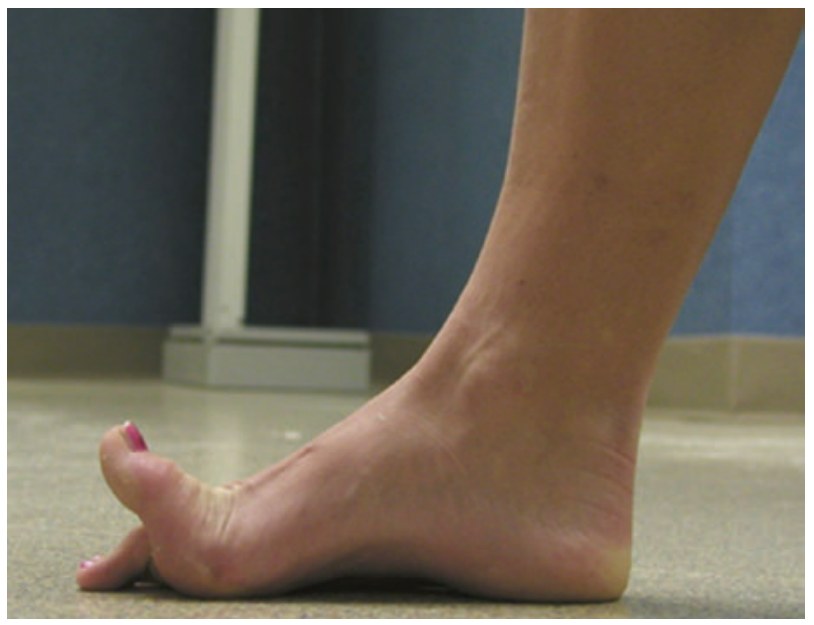
Тыльное разгибание первого плюснефалангового сустава (ПФС1), необходимое для нормальной ходьбы, оценивается в разных работах по-разному. Nawoczenski и соавт. с электромагнитной системой у 33 здоровых добровольцев получили при ходьбе в среднем 42° тыльного разгибания; ближе всего к этой величине было активное разгибание стоя (44°) (рис. 49), тогда как при подъёме на носки регистрировалось 58° [4]. Hopson и соавт. по видеозаписи у 20 добровольцев оценили потребность при ходьбе примерно в 65° [11]. Различие объясняется методикой: положением маркеров, определением нулевого положения и тем, измеряется ли угол между фалангой и плюсневой костью или между фалангой и опорой. Во всех статических тестах, кроме пассивного разгибания стоя, объём превышал потребность ходьбы [4].
После артродеза ПФС1 по поводу hallux rigidus DeFrino и соавт. при анализе походки отметили укорочение шага, некоторую потерю подошвенного сгибания в голеностопном суставе при отрыве пальцев, снижение момента и мощности голеностопного сустава при отталкивании; при этом опорная функция первого луча восстанавливалась, и максимальная сила под дистальной фалангой первого пальца при отрыве пальцев была больше, чем до операции [12].
Отталкивание через поперечную и косую оси
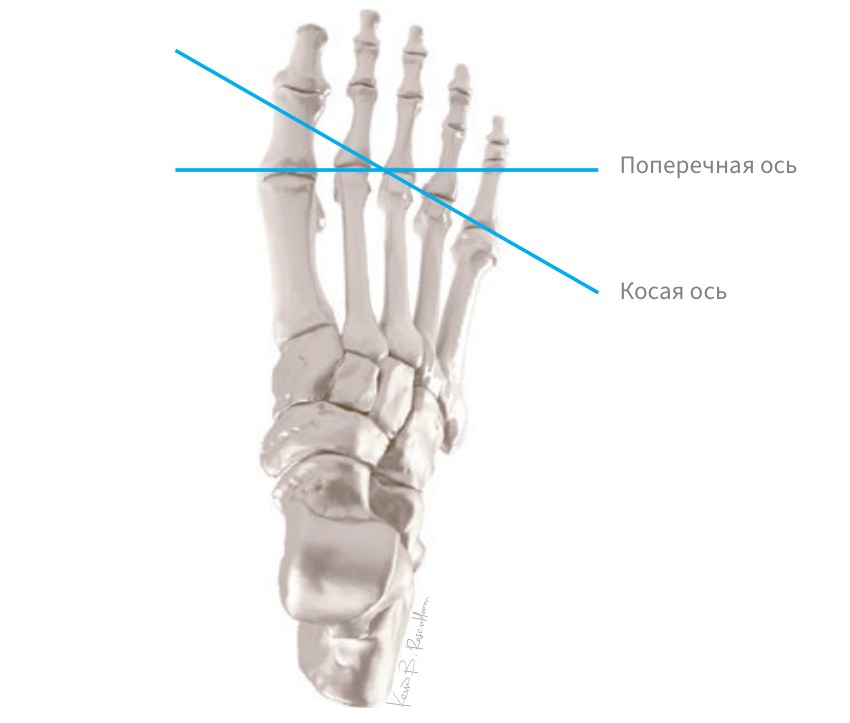
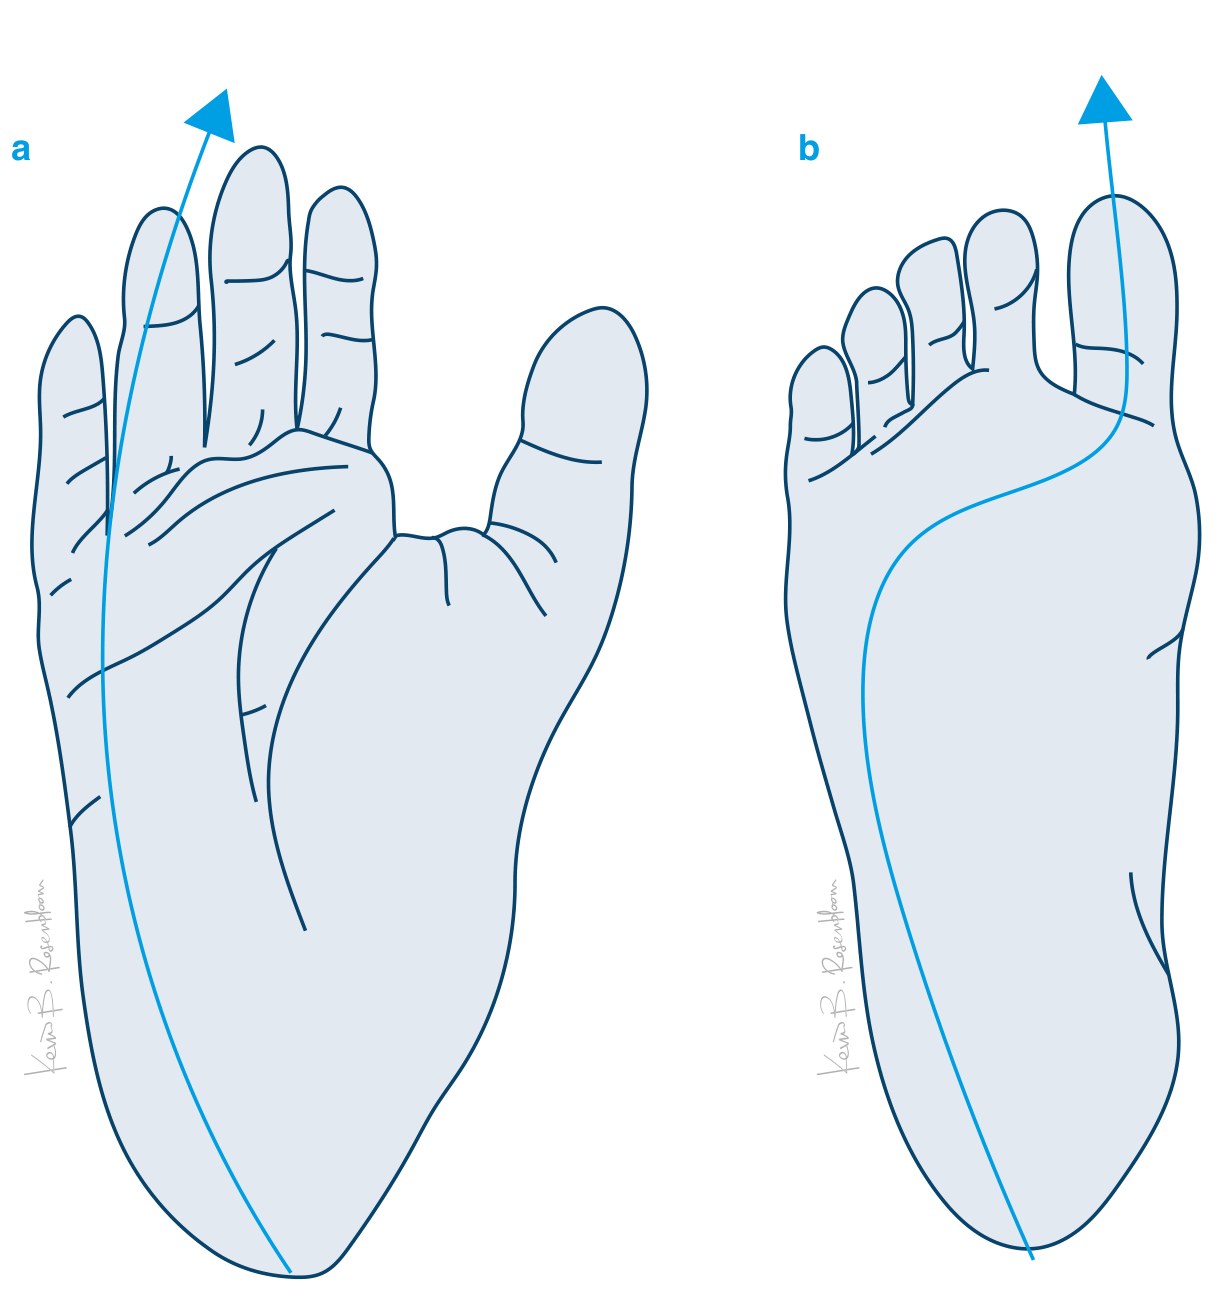
Bojsen-Møller описал две оси, через которые передний отдел перекатывается при отталкивании [45] (рис. 50). Поперечная ось проходит через головки I и II плюсневых костей, перпендикулярно направлению ходьбы; отталкивание через неё («высокая передача», high gear) сопровождается пронацией переднего отдела, натяжением длинной малоберцовой мышцы и апоневроза и стабилизацией поперечного сустава предплюсны. Косая ось проходит через головки II–V плюсневых костей; при отталкивании через неё («низкая передача», low gear) стопа инвертирована, пяточно-кубовидный сустав разомкнут, нагрузка проходит по латеральному (малоберцовому) краю стопы (рис. 51).
Распределение нагрузки по головкам плюсневых костей
При отталкивании первая плюсневая кость несёт наибольшую нагрузку (рис. 52). По расчёту Jacob для второго пика реакции опоры, результирующая сила на головку I плюсневой кости составляет около 119% массы тела, на головку II — около 45% массы тела при большом изгибающем моменте; сухожилия длинного и короткого сгибателей первого пальца передают около 52% и 36% массы тела, длинная малоберцовая мышца — более 58% [27]. II плюсневая кость, нагруженная на изгиб, особенно чувствительна к утрате опоры через первый луч и к фасциотомии [15]. В положении стоя пиковое давление под передним отделом обычно располагается под головками II или III плюсневых костей [28].
Значение длины плюсневых костей
Длину плюсневых костей и их соотношение (параболу Maestro) традиционно связывают с перегрузкой головок. Kaipel и соавт. у 91 пациента (102 стопы) с метатарзалгией и без неё не нашли корреляции относительной длины I и III плюсневых костей с пиковым давлением и максимальной силой под соответствующими головками (r < 0,13); в группе метатарзалгии была снижена максимальная сила под головкой I плюсневой кости, а пиковое давление между группами не различалось [61]. Авторы поставили под сомнение укорочение симптомного луча с целью разгрузки, если оно основано только на длине. Эти данные согласуются с ведущей ролью первого луча в распределении нагрузки [27].
Значение для осмотра и планирования операции
Объём тыльного разгибания ПФС1 оценивается активным разгибанием стоя: этот тест лучше других соответствует движению при ходьбе [4]. При hallux rigidus потерю разгибания стопа компенсирует перекатом через латеральный край и низкую передачу, что перегружает малые плюсневые кости. Артродез ПФС1 восстанавливает опору через первый луч ценой укорочения шага и снижения мощности отталкивания. При выборе уровня артродеза медиальной колонны учитывается, что основную часть сагиттального движения первого луча даёт ладьевидно-клиновидный сустав, а ПлКС1 — меньшую. Решение об укорачивающей остеотомии малых плюсневых костей принимается с учётом функции первого луча и икроножной мышцы, поскольку длина плюсневой кости сама по себе с нагрузкой под головкой не коррелирует.
Мышцы: управление стопой в опоре
Фазная активность основных групп
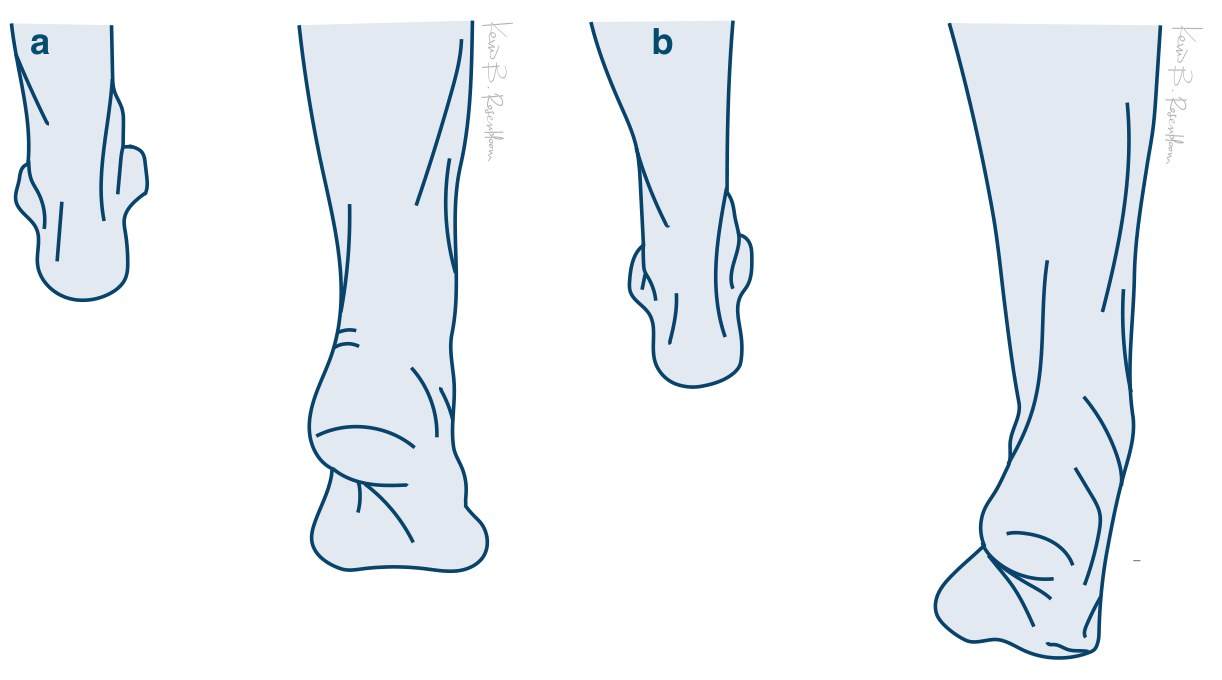
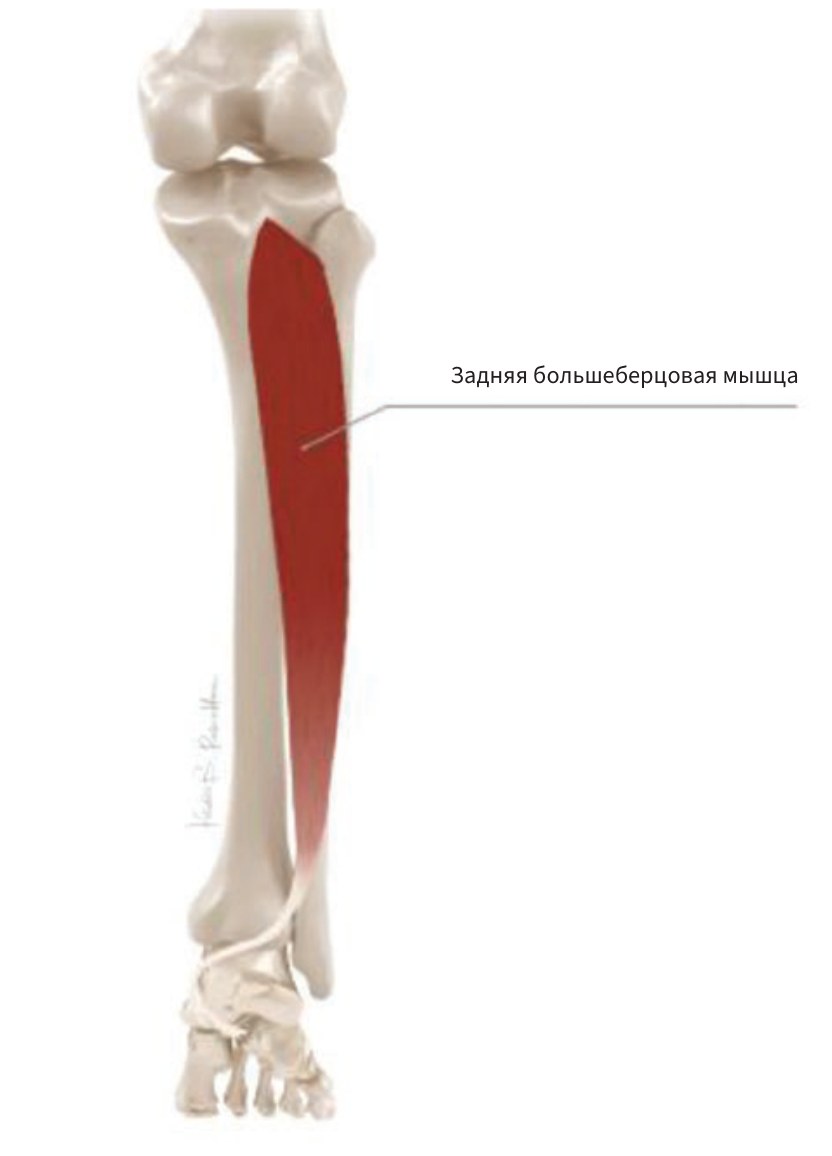
Последовательность включения мышц голени при ходьбе описана Perry по данным количественной электромиографии [21]. Передняя большеберцовая мышца (ПББМ) наиболее активна при начальном контакте и в реакции на нагрузку, где она эксцентрически тормозит подошвенное сгибание стопы, и в периоде переноса, где она поднимает стопу. Трёхглавая мышца голени (камбаловидная и икроножная) включается в средней опоре, достигает пика в конечной опоре и выключается к предмаху. Задняя большеберцовая мышца (ЗББМ) включается сразу после начального контакта и тормозит пронацию заднего отдела и внутреннюю ротацию голени (рис. 53); длинный сгибатель пальцев (ДСП) включается позже, с началом средней опоры. Длинный сгибатель большого пальца (ДСБП), длинная и короткая малоберцовые мышцы активны в средней и конечной опоре [21].
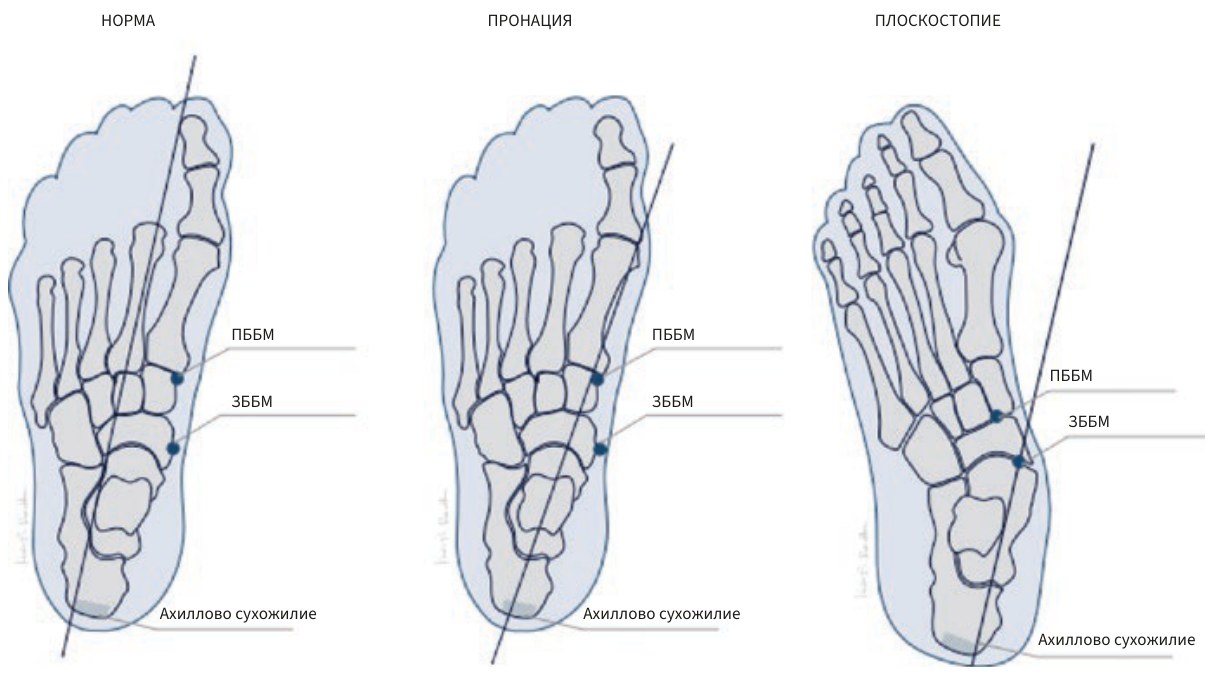
Поверхностная электромиография уточнила роли отдельных мышц: длинная малоберцовая мышца вызывает эверсию после контакта пятки, а после отрыва пятки стабилизирует передний отдел; короткая малоберцовая мышца в поздней опоре тормозит наружную ротацию голени над стопой [23]. Активность мышц зависит от формы стопы. Murley и соавт. с внутримышечными электродами у 60 здоровых добровольцев показали, что при плоском своде в фазе контакта пиковая активность ПББМ выше (65% против 46% от максимального произвольного сокращения), а длинной малоберцовой — ниже (24% против 37%); в средней опоре и при отталкивании пиковая активность ЗББМ выше (86% против 60%) [62]. Авторы трактовали это как нервно-мышечную компенсацию перегрузки медиального свода.
Роли камбаловидной и икроножной мышц различаются. В моделировании ходьбы Neptune и соавт. обе мышцы обеспечивали вертикальную опору туловища в одиночной опоре и в предмахе; во второй половине опоры камбаловидная мышца ускоряла туловище вперёд, тогда как икроножная передавала почти всю свою энергию конечности для начала переноса [63].
Сила, плечо момента и вклад в трёх плоскостях
Момент, который мышца создаёт в суставе, определяется её силой (площадью физиологического поперечника) и плечом момента — расстоянием от оси сустава до линии действия сухожилия. Silver и соавт. по длине волокон и массе мышц пяти конечностей рассчитали относительную силу мышц голени: сгибатели стопы оказались в 6 раз сильнее разгибателей [16]. Авторы отказались от концепции «мышечного баланса» при транспозициях сухожилий и предложили ориентироваться на соответствие задачи.
Плечи моментов измерены на кадаверных препаратах. McCullough и соавт. на симуляторе с непрерывным движением в трёх плоскостях получили наибольшее плечо при подошвенном/тыльном сгибании у ахиллова сухожилия (53,1 ± 5,1 мм), при внутренней/наружной ротации стопы — у короткой малоберцовой мышцы (20,5 ± 6,4 мм), при инверсии/эверсии — у длинной малоберцовой мышцы (31 ± 2,3 мм) [17]. Klein и соавт. методом экскурсии сухожилий определили для подтаранного сустава наибольшее инверсионное плечо у ЗББМ (19,1 мм) при очень малом у ПББМ (3,8 мм) и почти одинаковые эверсионные плечи длинной и короткой малоберцовых мышц (21,8 и 20,5 мм) (рис. 54); среднее плечо трёхглавой мышцы во всём диапазоне движения было малым (около 5,3 мм по модулю), причём в положении эверсии оно становилось инверсионным, а в положении инверсии — эверсионным [64]. Этот результат кадаверной работы расходится с распространённой клинической моделью, по которой при вальгусе пятки ахиллово сухожилие усиливает эверсию (см. ниже); данные о направлении действия трёхглавой мышцы во фронтальной плоскости остаются противоречивыми. Направление действия трёхглавой мышцы во фронтальной плоскости, таким образом, зависит от положения пятки.
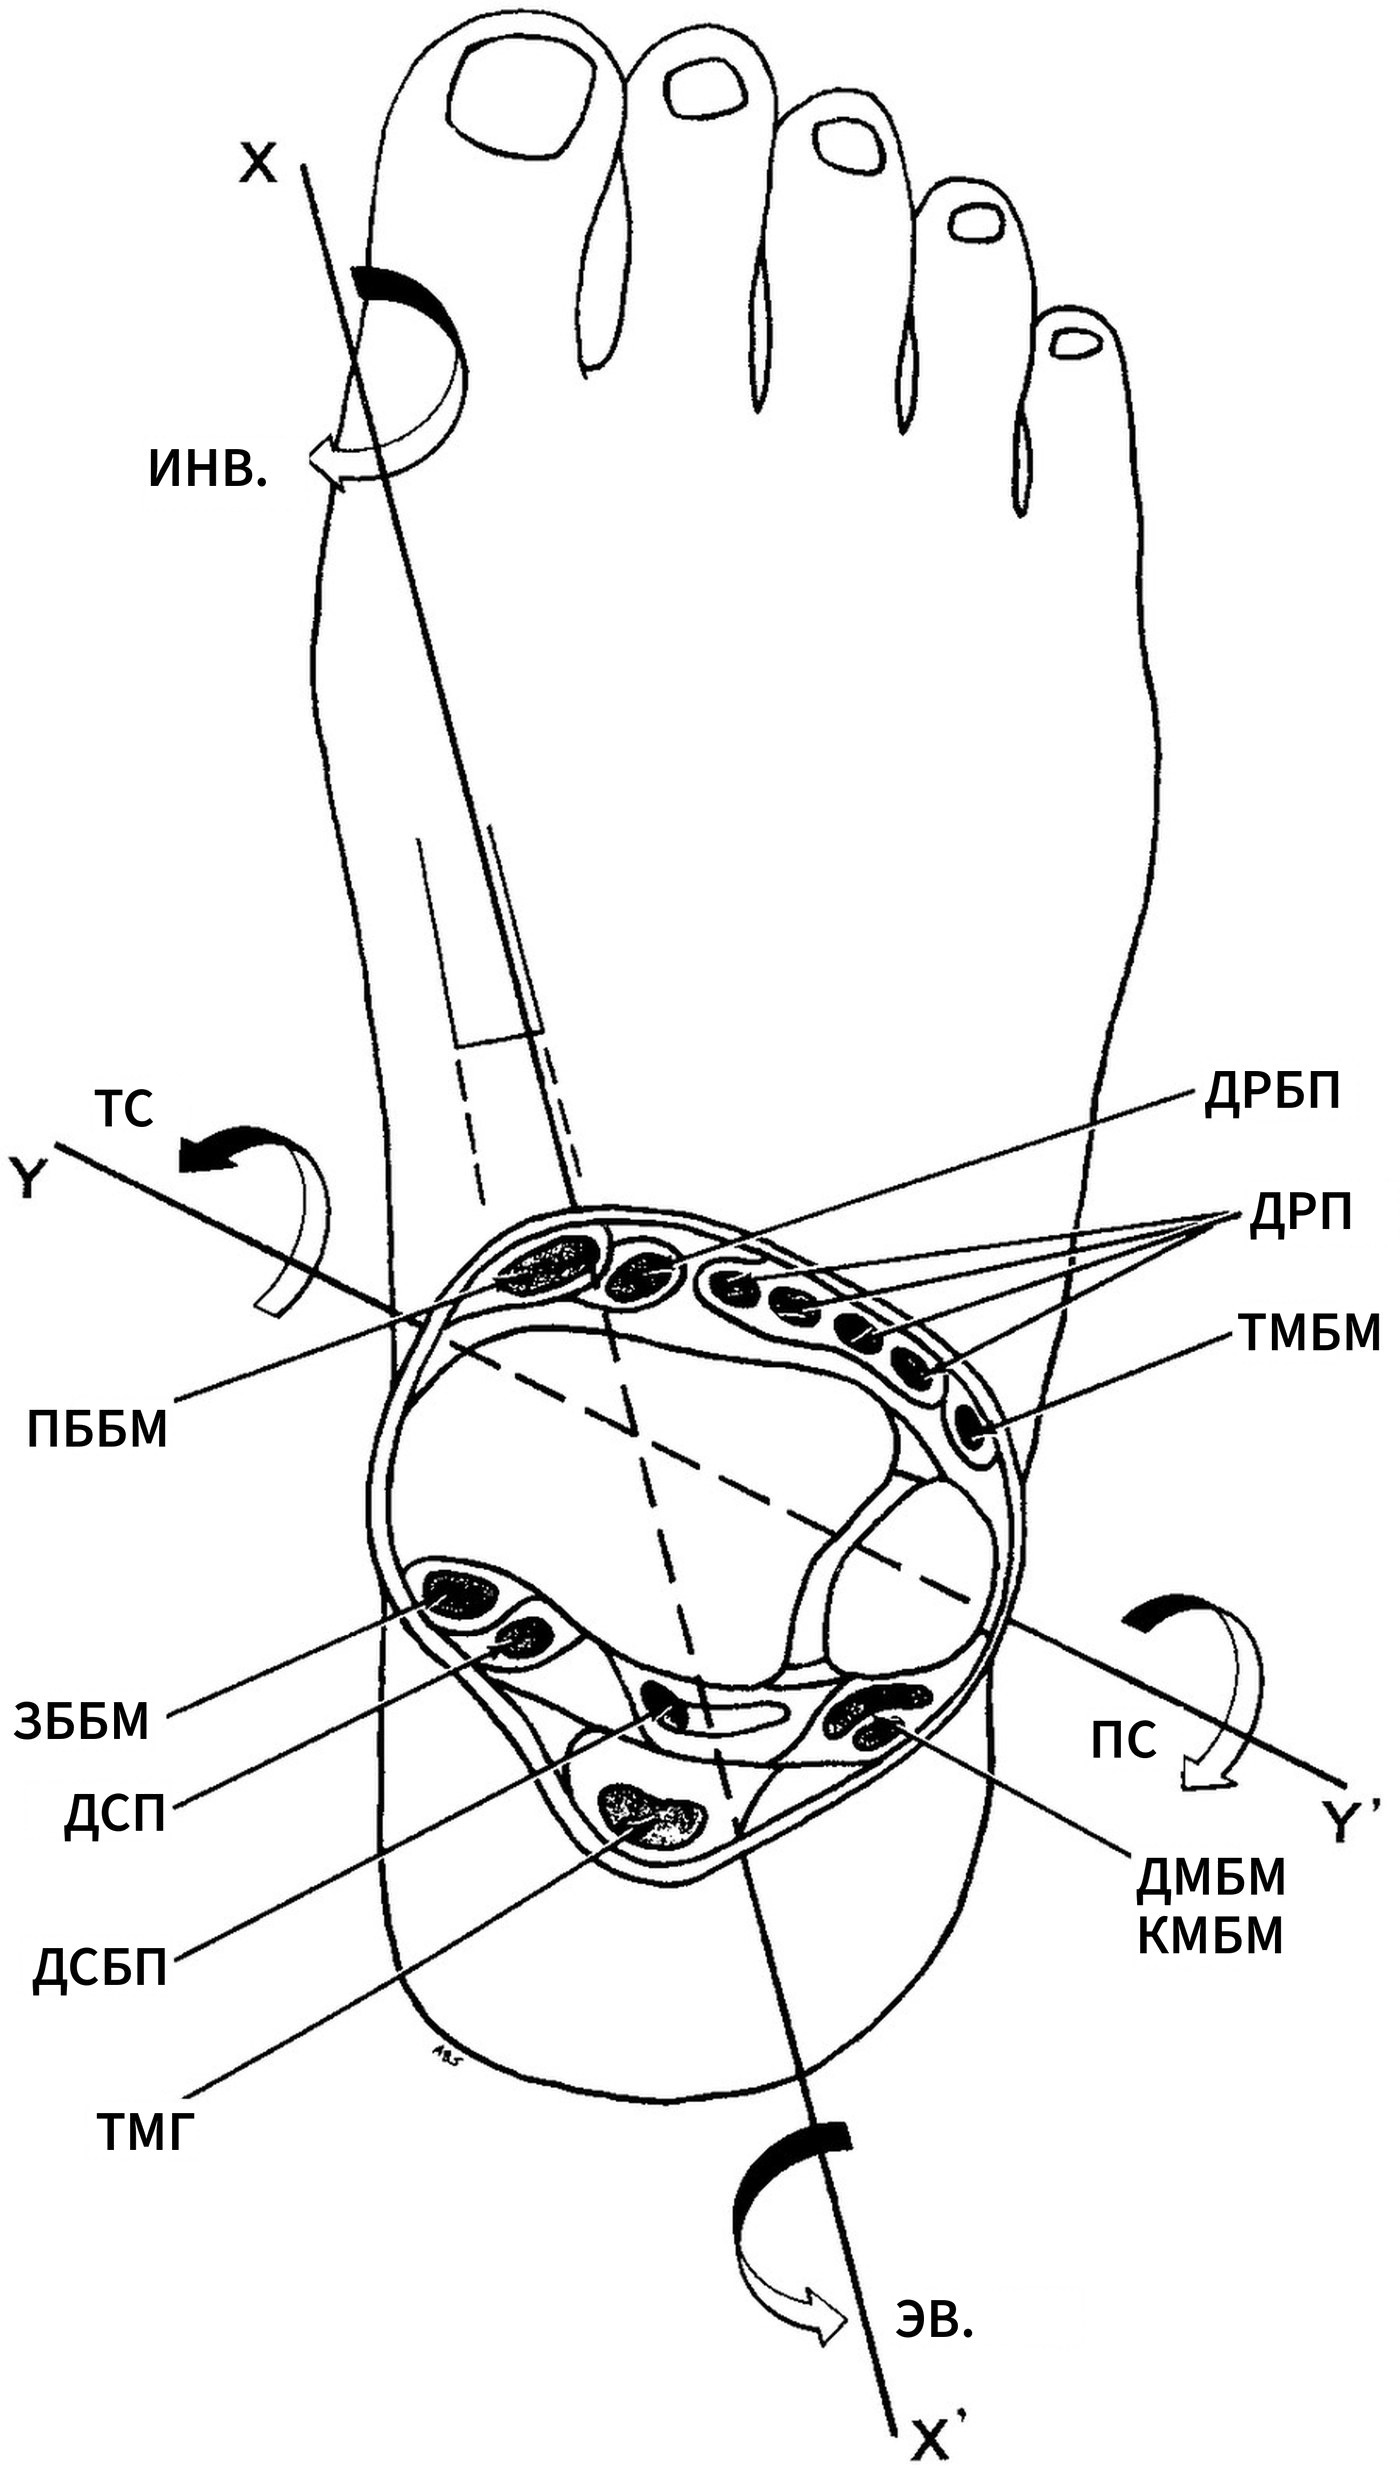
Объединив плечи моментов McCullough и площади поперечника Wickiewicz, Richie рассчитал моментный потенциал мышц в трёх плоскостях: камбаловидная мышца даёт около 107,5 Н·м подошвенного сгибания, икроножная — 59,3 Н·м, ДСБП — 4,3 Н·м (рис. 55); ЗББМ создаёт момент приведения стопы 15,7 Н·м против 3,9 Н·м у ДСП, и этот момент вдвое больше её собственного момента инверсии (7,5 Н·м), а длинная малоберцовая мышца — главный эвертор (13,1 Н·м) и главный отводящий мышечный компонент (6,7 Н·м) [22]. По этой оценке ЗББМ прежде всего удерживает стопу от отведения, что соответствует отведению переднего отдела как ведущему компоненту деформации при её несостоятельности.
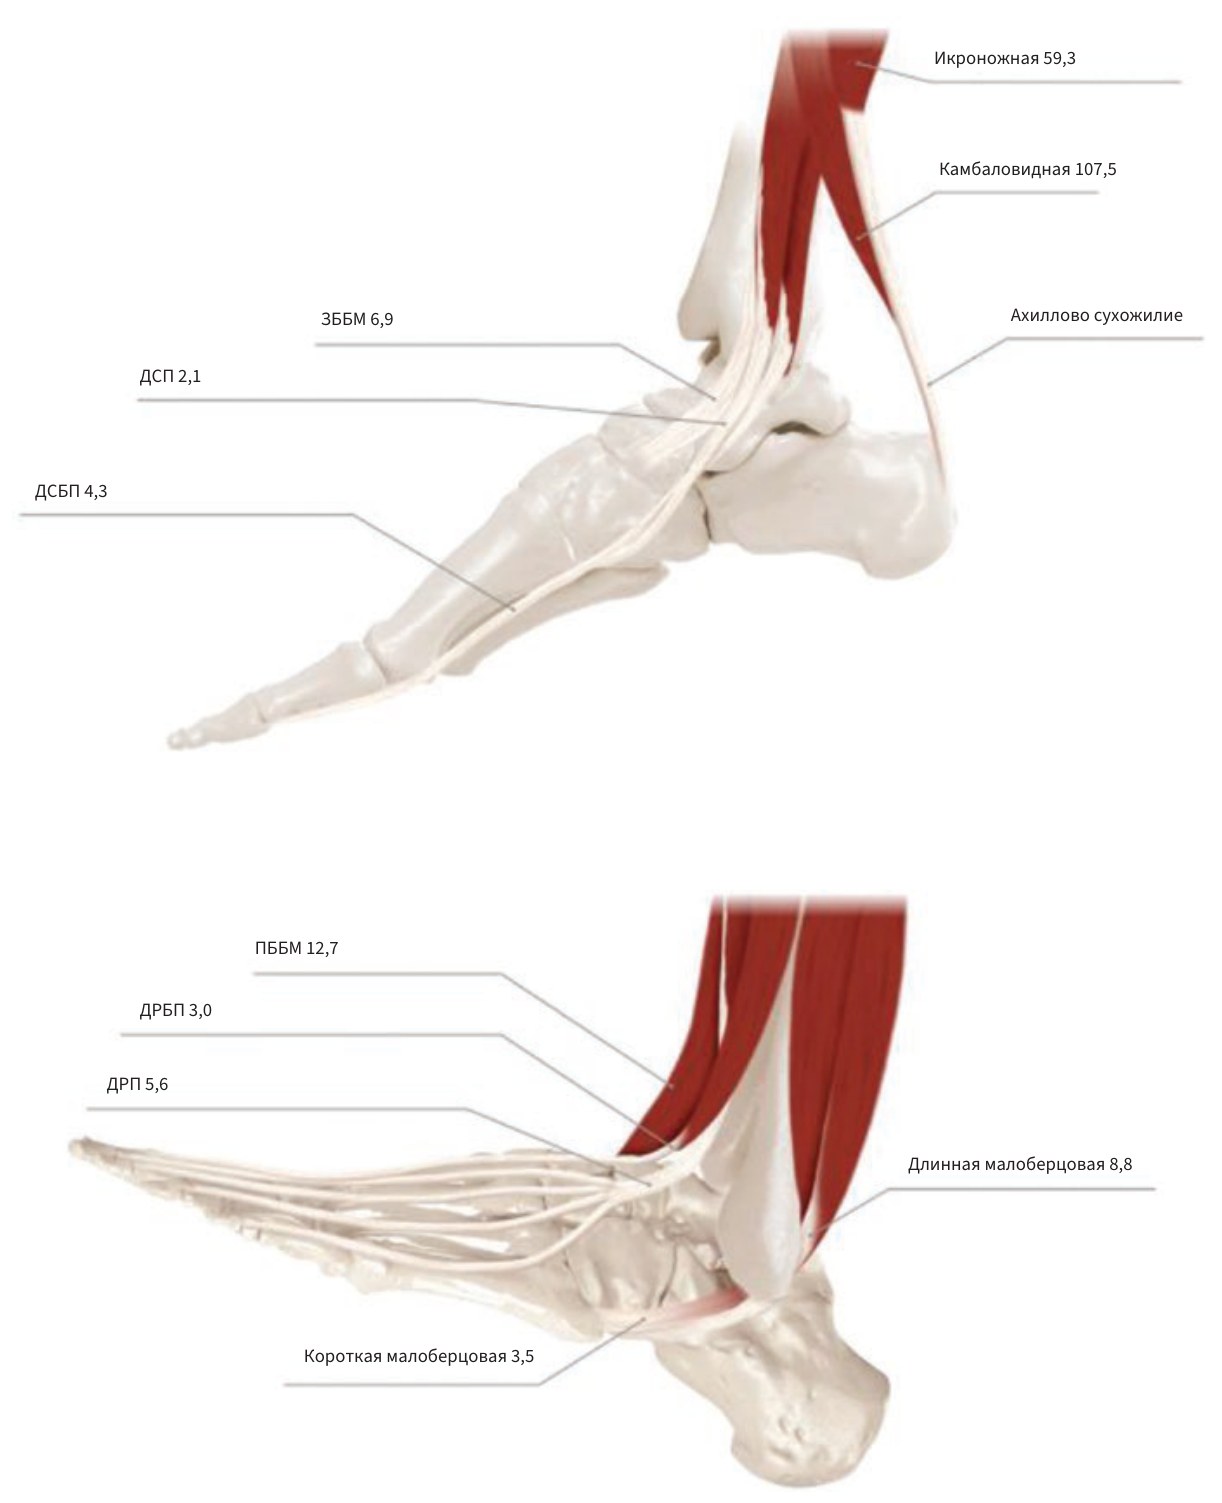
Эксцентрическая работа
Основная работа мышц голени в опоре — торможение. ПББМ эксцентрически тормозит подошвенное сгибание в пяточном перекате [23], трёхглавая мышца — продвижение голени в голеностопном перекате [21]. В голеностопном суставе при принятии нагрузки регистрируется отрицательная работа, при отталкивании — положительная [24]. Эксцентрический режим определяет и уязвимость: сокращение под удлинением развивает большую силу, и именно в этих фазах нагружены сухожилия.
Что меняет транспозиция сухожилий
Транспозиция сухожилия переносит мышцу с её силой и экскурсией в новое место и меняет её плечо момента. Silver и соавт. указали, что при контрактуре экскурсия мышцы уменьшается, а удлинение сухожилия исправляет деформацию, но активный объём движения не восстанавливает [16].
Перенос ДСП при несостоятельности ЗББМ. По моментному потенциалу ДСП многократно уступает ЗББМ (см. выше), а после переноса его плечо момента дополнительно уменьшается: Hui и соавт. на кадаверных препаратах показали снижение плеча момента ДСП на 56% при фиксации к медиальной клиновидной кости и на 46% — к ладьевидной [65]. Перенесённое сухожилие поэтому не воспроизводит силу ЗББМ и требует костной коррекции и восстановления связок. В сочетании с артродезом таранно-ладьевидного сустава, который сохраняет лишь 25% экскурсии сухожилия ЗББМ [2], транспозиция теряет функцию активного стабилизатора.
Перенос ЗББМ на тыл стопы при свисающей стопе. Dreher и соавт. при трёхмерном анализе походки у пациентов с болезнью Шарко–Мари–Тута после переноса ЗББМ на тыл стопы получили значимое увеличение тыльного сгибания в периоде переноса без уменьшения пассивного подошвенного сгибания; активное подошвенное сгибание при отталкивании при этом снижалось [66]. Перенесённая мышца, бывшая сгибателем стопы, работает как разгибатель в переносе, но стопа теряет часть силы отталкивания.
Перенос ДСБП на пяточную кость при несостоятельности ахиллова сухожилия. По моментному потенциалу ДСБП многократно уступает камбаловидной мышце (см. выше). Перенос ДСБП усиливает несостоятельное ахиллово сухожилие и даёт ему васкуляризированную ткань, но не заменяет трёхглавую мышцу по силе.
Значение для осмотра и планирования операции
Сила мышц голени оценивается с учётом положения стопы: инверсионное плечо ЗББМ и эверсионное действие малоберцовых мышц зависят от положения пятки, а трёхглавая мышца при вальгусе пятки усиливает эверсию (рис. 56). Несостоятельность ЗББМ проявляется прежде всего отведением переднего отдела. Планируя транспозицию, хирург сопоставляет силу и экскурсию донорской мышцы с задачей и учитывает, что перенос уменьшает плечо момента. Сочетание транспозиции с артродезом, выключающим движение (таранно-ладьевидный, тройной артродез), оставляет перенесённому сухожилию функцию тенодеза.
Укорочение икроножной мышцы
Определение и порог тыльного сгибания
Эквинус (equinus) — ограничение тыльного сгибания стопы в голеностопном суставе. Изолированное укорочение икроножной мышцы (isolated gastrocnemius contracture) проявляется ограничением тыльного сгибания при разогнутом колене, которое уменьшается или исчезает при согнутом колене, поскольку двусуставная икроножная мышца расслабляется; укорочение всего трёхглавого комплекса ограничивает тыльное сгибание при любом положении колена. Источник ограничения различает тест Сильвершёльда («Осмотр заднего отдела стопы» ).
Порог определения зависит от выбранной границы. DiGiovanni и соавт. у пациентов с патологией переднего и среднего отдела стопы получили среднее максимальное тыльное сгибание при разогнутом колене 4,5° против 13,1° в контрольной группе, при согнутом до 90° колене — 17,9° против 22,3° (различие незначимо) [19]. При пороге ≤5° с разогнутым коленом укорочение икроножной мышцы выявлено у 65% пациентов и 24% контроля, при пороге ≤10° — у 88% и 44% соответственно; укорочение трёхглавого комплекса (≤10° при согнутом колене) — у 29% и 15% [19]. Charles и соавт. предложили двухступенчатое определение: тыльное сгибание менее 10° с небольшой компенсацией и небольшим ростом давления под передним отделом и менее 5° с выраженной компенсацией и выраженным ростом давления [34].
Распределение тыльного сгибания у здоровых людей широкое. Chan и соавт. у 400 взрослых без патологии стопы при тесте выпада с нагрузкой получили максимальное тыльное сгибание от 8° до 52°; разница между положениями колена (индекс тыльного сгибания) составила в среднем 6,04 ± 3,49° (0–19°), увеличивалась с возрастом и уменьшалась с физической активностью [67]. Порог эквинуса, таким образом, условен, а у пациента сравниваются измерения в двух положениях колена и обе стороны.
Угол тыльного сгибания, измеренный по стопе, включает движение в суставах свода: от 10% до 41% поворота стопы от подошвенного сгибания к нейтральному положению происходит дистальнее голеностопного сустава [33]. Поэтому тыльное сгибание измеряется с удержанием заднего отдела в нейтральном положении и блокированием среднего отдела.
Компенсации в шаге
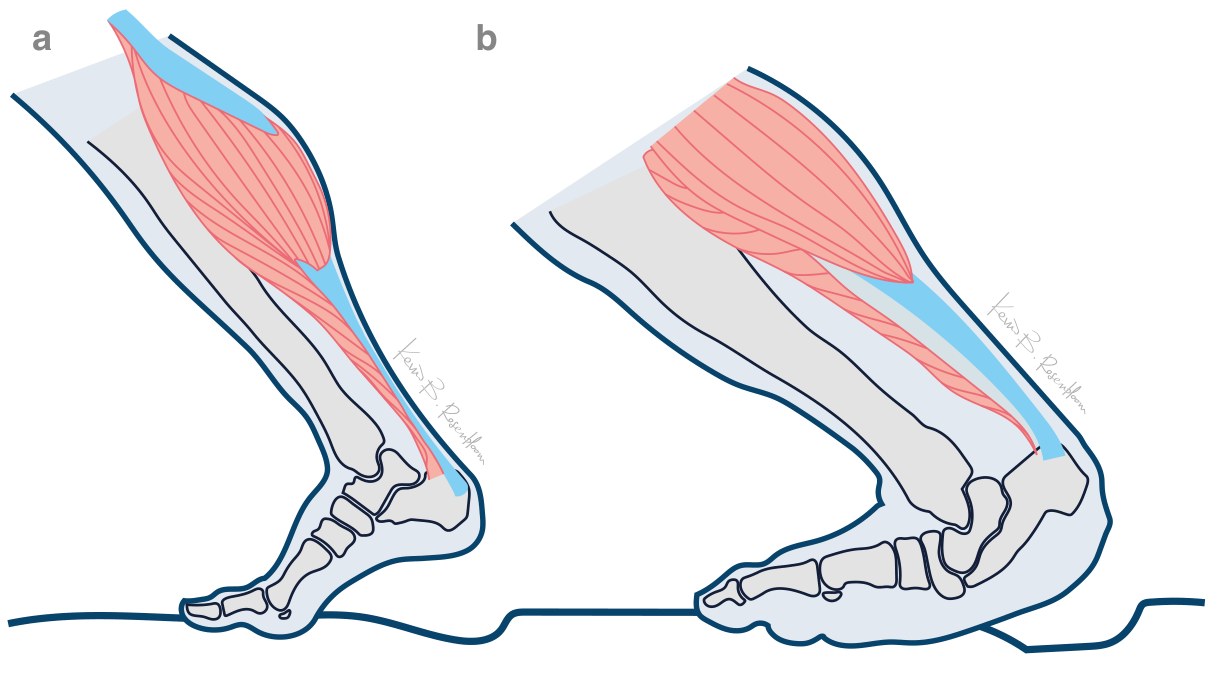
Укорочение икроножной мышцы ограничивает продвижение голени в голеностопном перекате при разогнутом колене. Стопа компенсирует его несколькими способами: ранним отрывом пятки, при котором пятка поднимается до того, как противоположная стопа поравняется с опорной; сгибанием колена; переломом среднего отдела, когда недостающее тыльное сгибание замещается движением в суставах среднего отдела (рис. 57); пронацией заднего отдела, разблокирующей средний отдел; укорочением шага и контактом передним или средним отделом вместо пятки [22]. При переломе среднего отдела ранний отрыв пятки может отсутствовать, и эквинус при наблюдении походки маскируется.
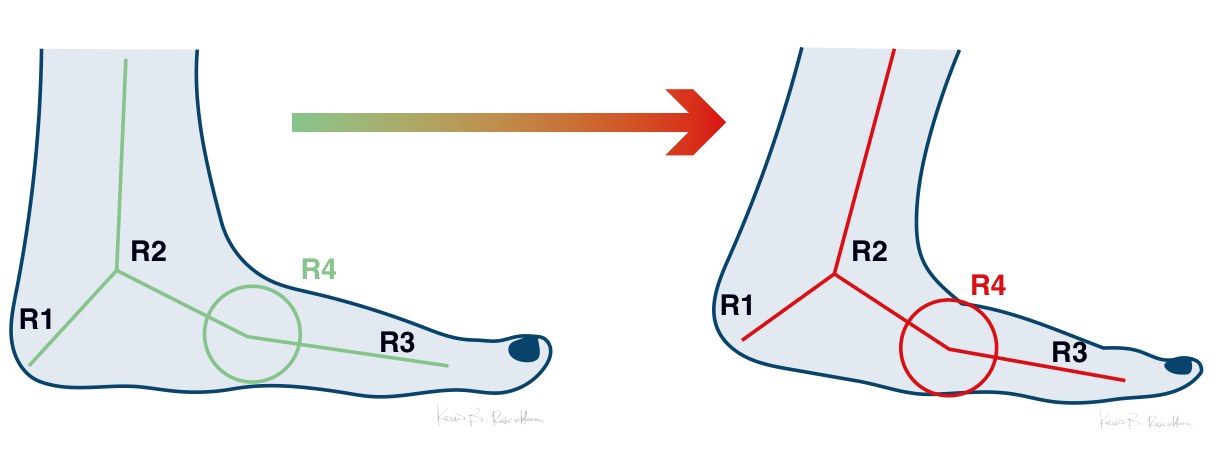
Механическое следствие — перегрузка переднего отдела. На кадаверных препаратах Aronow и соавт. увеличение силы трёхглавой мышцы с 0 до 93 Н увеличивало долю подошвенной силы под передним отделом в среднем на 59%, под средним — на 38% и уменьшало её под задним на 18%; увеличение силы одной икроножной мышцы давало +50%, +32% и −16% соответственно [20]. Вклад эквинуса в давление под передним отделом при ходьбе, однако, оказался меньше, чем ожидалось: у 27 пациентов с сахарным диабетом связь ограничения тыльного сгибания с пиковым давлением под передним отделом была значимой, но объясняла лишь небольшую часть вариабельности (R² = 0,149) [68]. Авторы призвали к осторожности при удлинении сухожилий с целью снизить давление под передним отделом без чётких показаний.
Связь с патологией стопы
Связь укорочения икроножной мышцы с патологией стопы показана в нескольких группах пациентов. При подошвенном фасциите Patel и DiGiovanni у 254 пациентов выявили ограничение тыльного сгибания в 83% случаев, причём у 57% — изолированное укорочение икроножной мышцы и у 26% — укорочение трёхглавого комплекса [69]. Частота выявления зависит от порога: в работе DiGiovanni и соавт. доля пациентов с укорочением икроножной мышцы менялась с 65% до 88% при переходе от порога ≤5° к порогу ≤10° [19].
Наиболее убедительные данные о клиническом значении эквинуса получены при нейропатической язве переднего отдела стопы. В рандомизированном исследовании Mueller и соавт. у пациентов с сахарным диабетом и тыльным сгибанием ≤5° удлинение ахиллова сухожилия в дополнение к тотальной контактной гипсовой повязке снизило частоту рецидива язвы через 7 месяцев с 59% до 15%, через 2 года — с 81% до 38% [70]. Пиковое давление под передним отделом после удлинения снижалось, но к седьмому месяцу возвращалось к исходному уровню, как и сила сгибателей стопы [70].
Удлинение имеет цену. После рецессии икроножной мышцы при синдроме перегрузки переднего отдела Schmal и соавт. зарегистрировали увеличение тыльного сгибания с 2° до 15°, увеличение времени контакта пятки на 15% и смещение нагрузки под головками плюсневых костей медиально; сила сгибателей стопы была снижена примерно на 40% через 6 недель и примерно на 10% через 24 недели по сравнению с противоположной стороной [18].
Значение для осмотра и планирования операции
Тест Сильвершёльда выполняется у каждого пациента с патологией переднего отдела, подошвенным фасциитом, плосковальгусной деформацией и перед артродезами среднего и заднего отдела («Осмотр заднего отдела стопы» ). Результат записывается в градусах для обоих положений колена с указанием выбранного порога. При наблюдении походки отсутствие раннего отрыва пятки эквинус не исключает, если средний отдел подвижен. При планировании реконструкции стопы с укорочением икроножной мышцы оставленный эквинус продолжает нагружать передний и средний отдел через перелом среднего отдела и пронацию, поэтому его коррекция планируется вместе с коррекцией деформации. Решение об удлинении учитывает временную потерю силы сгибателей стопы и то, что эквинус объясняет лишь часть перегрузки переднего отдела.
Источники
Stauffer RN, Chao EY, Brewster RC. Force and motion analysis of the normal, diseased, and prosthetic ankle joint. Clin Orthop Relat Res. 1977;(127):189-96. PubMed
Astion DJ, Deland JT, Otis JC, Kenneally S. Motion of the hindfoot after simulated arthrodesis. J Bone Joint Surg Am. 1997;79(2):241-6. doi
Venkadesan M, Yawar A, Eng CM, Dias MA, Singh DK, Tommasini SM, et al. Stiffness of the human foot and evolution of the transverse arch. Nature. 2020;579(7797):97-100. doi
Nawoczenski DA, Baumhauer JF, Umberger BR. Relationship between clinical measurements and motion of the first metatarsophalangeal joint during gait. J Bone Joint Surg Am. 1999;81(3):370-6. doi
Arndt A, Westblad P, Winson I, Hashimoto T, Lundberg A. Ankle and subtalar kinematics measured with intracortical pins during the stance phase of walking. Foot Ankle Int. 2004;25(5):357-64. doi
Sealey RJ, Myerson MS, Molloy A, Gamba C, Jeng C, Kalesan B. Sagittal plane motion of the hindfoot following ankle arthrodesis: a prospective analysis. Foot Ankle Int. 2009;30(3):187-96. doi
Coester LM, Saltzman CL, Leupold J, Pontarelli W. Long-term results following ankle arthrodesis for post-traumatic arthritis. J Bone Joint Surg Am. 2001;83(2):219-28. doi
van den Bogert AJ, Smith GD, Nigg BM. In vivo determination of the anatomical axes of the ankle joint complex: an optimization approach. J Biomech. 1994;27(12):1477-88. doi
Nester CJ, Liu AM, Ward E, Howard D, Cocheba J, Derrick T, et al. In vitro study of foot kinematics using a dynamic walking cadaver model. J Biomech. 2007;40(9):1927-37. doi
Roling BA, Christensen JC, Johnson CH. Biomechanics of the first ray. Part IV: the effect of selected medial column arthrodeses. A three-dimensional kinematic analysis in a cadaver model. J Foot Ankle Surg. 2002;41(5):278-85. doi
Hopson MM, McPoil TG, Cornwall MW. Motion of the first metatarsophalangeal joint. Reliability and validity of four measurement techniques. J Am Podiatr Med Assoc. 1995;85(4):198-204. doi
DeFrino PF, Brodsky JW, Pollo FE, Crenshaw SJ, Beischer AD. First metatarsophalangeal arthrodesis: a clinical, pedobarographic and gait analysis study. Foot Ankle Int. 2002;23(6):496-502. doi
Erdemir A, Hamel AJ, Fauth AR, Piazza SJ, Sharkey NA. Dynamic loading of the plantar aponeurosis in walking. J Bone Joint Surg Am. 2004;86(3):546-52. doi
Huang CK, Kitaoka HB, An KN, Chao EY. Biomechanical evaluation of longitudinal arch stability. Foot Ankle. 1993;14(6):353-7. doi
Sharkey NA, Donahue SW, Ferris L. Biomechanical consequences of plantar fascial release or rupture during gait. Part II: alterations in forefoot loading. Foot Ankle Int. 1999;20(2):86-96. doi
Silver RL, de la Garza J, Rang M. The myth of muscle balance. A study of relative strengths and excursions of normal muscles about the foot and ankle. J Bone Joint Surg Br. 1985;67(3):432-7. doi
McCullough MB, Ringleb SI, Arai K, Kitaoka HB, Kaufman KR. Moment arms of the ankle throughout the range of motion in three planes. Foot Ankle Int. 2011;32(3):300-6. doi
Schmal H, Walther M, Hirschmüller A, Bunert N, Südkamp NP, Mehlhorn AT. Gastrocnemius recession leads to medial shift of gait line, impairment of muscle strength and improved dorsal extension in forefoot overload syndrome. Foot Ankle Surg. 2018;24(4):309-313. doi
DiGiovanni CW, Kuo R, Tejwani N, Price R, Hansen ST, Cziernecki J, et al. Isolated gastrocnemius tightness. J Bone Joint Surg Am. 2002;84(6):962-70. doi
Aronow MS, Diaz-Doran V, Sullivan RJ, Adams DJ. The effect of triceps surae contracture force on plantar foot pressure distribution. Foot Ankle Int. 2006;27(1):43-52. doi
Perry J, Burnfield JM. Gait analysis: normal and pathological function. 2nd ed. Thorofare: SLACK; 2010.
Richie DH Jr. Pathomechanics of common foot disorders. Cham: Springer; 2021. doi
Hunt AE, Smith RM, Torode M. Extrinsic muscle activity, foot motion and ankle joint moments during the stance phase of walking. Foot Ankle Int. 2001;22(1):31-41. doi
Winter DA. Energy generation and absorption at the ankle and knee during fast, natural, and slow cadences. Clin Orthop Relat Res. 1983;(175):147-54. PubMed
Lundgren P, Nester C, Liu A, Arndt A, Jones R, Stacoff A, et al. Invasive in vivo measurement of rear-, mid- and forefoot motion during walking. Gait Posture. 2008;28(1):93-100. doi
Caravaggi P, Pataky T, Goulermas JY, Savage R, Crompton R. A dynamic model of the windlass mechanism of the foot: evidence for early stance phase preloading of the plantar aponeurosis. J Exp Biol. 2009;212(Pt 15):2491-9. doi
Jacob HA. Forces acting in the forefoot during normal gait–an estimate. Clin Biomech (Bristol). 2001;16(9):783-92. doi
Cavanagh PR, Rodgers MM, Iiboshi A. Pressure distribution under symptom-free feet during barefoot standing. Foot Ankle. 1987;7(5):262-76. doi
Inman VT. The joints of the ankle. Baltimore: Williams & Wilkins; 1976.
Wolf P, Moor R, Lundberg A, Nester C, Arndt A, Graf E. Human ankle joint movements during walking are probably not determined by talar morphology. Sci Rep. 2022;12(1):13856. doi
Siegler S, Toy J, Seale D, Pedowitz D. The Clinical Biomechanics Award 2013 – presented by the International Society of Biomechanics: new observations on the morphology of the talar dome and its relationship to ankle kinematics. Clin Biomech (Bristol). 2014;29(1):1-6. doi
de Asla RJ, Wan L, Rubash HE, Li G. Six DOF in vivo kinematics of the ankle joint complex: Application of a combined dual-orthogonal fluoroscopic and magnetic resonance imaging technique. J Orthop Res. 2006;24(5):1019-27. doi
Lundberg A, Goldie I, Kalin B, Selvik G. Kinematics of the ankle/foot complex: plantarflexion and dorsiflexion. Foot Ankle. 1989;9(4):194-200. doi
Charles J, Scutter SD, Buckley J. Static ankle joint equinus: toward a standard definition and diagnosis. J Am Podiatr Med Assoc. 2010;100(3):195-203. doi
Beyaert C, Sirveaux F, Paysant J, Molé D, André JM. The effect of tibio-talar arthrodesis on foot kinematics and ground reaction force progression during walking. Gait Posture. 2004;20(1):84-91. doi
Manter JT. Movements of the subtalar and transverse tarsal joints. Anat Rec. 1941;80(4):397-410. doi
Lundberg A, Svensson OK, Bylund C, Goldie I, Selvik G. Kinematics of the ankle/foot complex–Part 2: Pronation and supination. Foot Ankle. 1989;9(5):248-53. doi
Hintermann B, Nigg BM, Sommer C, Cole GK. Transfer of movement between calcaneus and tibia in vitro. Clin Biomech (Bristol). 1994;9(6):349-55. doi
Sarrafian SK. Functional characteristics of the foot and plantar aponeurosis under tibiotalar loading. Foot Ankle. 1987;8(1):4-18. doi
McPoil TG, Cornwall MW. Relationship between three static angles of the rearfoot and the pattern of rearfoot motion during walking. J Orthop Sports Phys Ther. 1996;23(6):370-5. doi
Youberg LD, Cornwall MW, McPoil TG, Hannon PR. The amount of rearfoot motion used during the stance phase of walking. J Am Podiatr Med Assoc. 2005;95(4):376-82. doi
Nester CJ, Jarvis HL, Jones RK, Bowden PD, Liu A. Movement of the human foot in 100 pain free individuals aged 18-45: implications for understanding normal foot function. J Foot Ankle Res. 2014;7(1):51. doi
Wülker N, Stukenborg C, Savory KM, Alfke D. Hindfoot motion after isolated and combined arthrodeses: measurements in anatomic specimens. Foot Ankle Int. 2000;21(11):921-7. doi
ELFTMAN H. The transverse tarsal joint and its control. Clin Orthop. 1960;16:41-6. PubMed
Bojsen-Møller F. Calcaneocuboid joint and stability of the longitudinal arch of the foot at high and low gear push off. J Anat. 1979;129(Pt 1):165-76. PubMed
Blackwood CB, Yuen TJ, Sangeorzan BJ, Ledoux WR. The midtarsal joint locking mechanism. Foot Ankle Int. 2005;26(12):1074-80. doi
Okita N, Meyers SA, Challis JH, Sharkey NA. Midtarsal joint locking: new perspectives on an old paradigm. J Orthop Res. 2014;32(1):110-5. doi
DeSilva JM, Bonne-Annee R, Swanson Z, Gill CM, Sobel M, Uy J, et al. Midtarsal break variation in modern humans: Functional causes, skeletal correlates, and paleontological implications. Am J Phys Anthropol. 2015;156(4):543-52. doi
Jennings MM, Christensen JC. The effects of sectioning the spring ligament on rearfoot stability and posterior tibial tendon efficiency. J Foot Ankle Surg. 2008;47(3):219-24. doi
Farris DJ, Kelly LA, Cresswell AG, Lichtwark GA. The functional importance of human foot muscles for bipedal locomotion. Proc Natl Acad Sci U S A. 2019;116(5):1645-1650. doi
Saltzman CL, Fehrle MJ, Cooper RR, Spencer EC, Ponseti IV. Triple arthrodesis: twenty-five and forty-four-year average follow-up of the same patients. J Bone Joint Surg Am. 1999;81(10):1391-402. PubMed
HICKS JH. The mechanics of the foot. II. The plantar aponeurosis and the arch. J Anat. 1954;88(1):25-30. PubMed
Welte L, Kelly LA, Lichtwark GA, Rainbow MJ. Influence of the windlass mechanism on arch-spring mechanics during dynamic foot arch deformation. J R Soc Interface. 2018;15(145):. doi
Ker RF, Bennett MB, Bibby SR, Kester RC, Alexander RM. The spring in the arch of the human foot. Nature. 1987;325(7000):147-9. doi
Stearne SM, McDonald KA, Alderson JA, North I, Oxnard CE, Rubenson J. The Foot’s Arch and the Energetics of Human Locomotion. Sci Rep. 2016;6:19403. doi
Cheung JT, An KN, Zhang M. Consequences of partial and total plantar fascia release: a finite element study. Foot Ankle Int. 2006;27(2):125-32. doi
De Prado M, Cuervas-Mons M, De Prado V, Golanó P, Vaquero J. Does the minimally invasive complete plantar fasciotomy result in deformity of the Plantar arch? A prospective study. Foot Ankle Surg. 2020;26(3):347-353. doi
HICKS JH. The mechanics of the foot. I. The joints. J Anat. 1953;87(4):345-57. PubMed
Wanivenhaus A, Pretterklieber M. First tarsometatarsal joint: anatomical biomechanical study. Foot Ankle. 1989;9(4):153-7. doi
Johnson CH, Christensen JC. Biomechanics of the first ray. Part I. The effects of peroneus longus function: a three-dimensional kinematic study on a cadaver model. J Foot Ankle Surg. 1999;38(5):313-21. doi
Kaipel M, Krapf D, Wyss C. Metatarsal length does not correlate with maximal peak pressure and maximal force. Clin Orthop Relat Res. 2011;469(4):1161-6. doi
Murley GS, Menz HB, Landorf KB. Foot posture influences the electromyographic activity of selected lower limb muscles during gait. J Foot Ankle Res. 2009;2:35. doi
Neptune RR, Kautz SA, Zajac FE. Contributions of the individual ankle plantar flexors to support, forward progression and swing initiation during walking. J Biomech. 2001;34(11):1387-98. doi
Klein P, Mattys S, Rooze M. Moment arm length variations of selected muscles acting on talocrural and subtalar joints during movement: an in vitro study. J Biomech. 1996;29(1):21-30. doi
Hui HE, Beals TC, Brown NA. Influence of tendon transfer site on moment arms of the flexor digitorum longus muscle. Foot Ankle Int. 2007;28(4):441-7. doi
Dreher T, Wolf SI, Heitzmann D, Fremd C, Klotz MC, Wenz W. Tibialis posterior tendon transfer corrects the foot drop component of cavovarus foot deformity in Charcot-Marie-Tooth disease. J Bone Joint Surg Am. 2014;96(6):456-62. doi
Chan O, Malhotra K, Buraimoh O, Cullen N, Welck M, Goldberg A, et al. Gastrocnemius tightness: A population based observational study. Foot Ankle Surg. 2019;25(4):517-522. doi
Orendurff MS, Rohr ES, Sangeorzan BJ, Weaver K, Czerniecki JM. An equinus deformity of the ankle accounts for only a small amount of the increased forefoot plantar pressure in patients with diabetes. J Bone Joint Surg Br. 2006;88(1):65-8. doi
Patel A, DiGiovanni B. Association between plantar fasciitis and isolated contracture of the gastrocnemius. Foot Ankle Int. 2011;32(1):5-8. doi
Mueller MJ, Sinacore DR, Hastings MK, Strube MJ, Johnson JE. Effect of Achilles tendon lengthening on neuropathic plantar ulcers. A randomized clinical trial. J Bone Joint Surg Am. 2003;85(8):1436-45. PubMed